[특집] 숲 방정식 — 하버드 물리학자와 Claude가 20년 묵은 생태학 공식을 끝까지 계산하자 벌어진 일: 'Claude 모양 과학' 해부
하버드 물리학자 매튜 슈워츠가 Claude와 함께 만든 도구 상자 BootLoops로 생태학의 중립 이론 공식(에티엔 2005)을 23만 그루 규모로 정확히 풀었다. 그러자 파나마 숲이 우연보다 4배 넘게 빨리 변한다는 숫자가 나왔다. 그러나 생태학자는 어깨를 으쓱했다. 허벨의 빈자리 추첨부터 스털링 수의 숫자 폭발, '중립을 빼고 나머지를 보라'는 전환, 미국 숲 지도, 36편의 원고와 실패 목록까지 'Claude 모양 과학'의 실체를 해부한다.
2026년 10월 1일, Anthropic 블로그에 「Claude 모양의 과학(Claude-shaped science)」이라는 객원 글이 올라왔습니다. 필자는 하버드 대학교 물리학과의 매튜 슈워츠(Matthew Schwartz) 교수입니다. 양자장론 교과서를 쓴 입자물리학자이고, 이 글을 쓸 당시 Anthropic의 방문 연구원이었습니다. 그는 석 달 동안 Claude와 함께 18개 분야에서 36편의 원고를 썼다고 밝혔습니다. 그중 가장 많이 회자된 것이 생태학 사례입니다. 2005년에 나온 생태학의 확률 공식을 "20년 동안 아무도 규모 있게 풀지 못했는데" Claude가 그것이 자기가 풀 수 있는 모양이라는 것을 알아보고 풀었다는 이야기입니다. 국내 보도는 이를 '20년 묵은 생태학 난제를 AI가 풀었다'로 소개했고, 이 글은 그 식을 편의상 '숲 방정식' 이라고 부르겠습니다.
그런데 원문을 꼼꼼히 읽으면 이야기는 헤드라인과 꽤 다릅니다. Claude가 계산을 끝낸 결과를 들고 생태학자에게 갔더니, 그 생태학자는 "많은 생태학자가 어깨를 으쓱할 것"이라고 답했습니다. 진짜 과학은 그다음에 시작됐습니다. 이 글은 그 전 과정을 따라갑니다.
세 줄 요약
① 무엇을 풀었나 — 숲의 종 구성이 '전부 우연'이라고 가정하는 생태학의 중립 이론(허벨 2001)에서, 실제 숲의 데이터가 나올 확률을 주는 에티엔(2005) 공식을 23만 그루 규모로, 증명된 오차 한계와 함께 정확히 계산했다. 같은 식이 입자물리의 계산 도구로 풀리는 모양이라는 것을 Claude가 알아봤다.
② 무엇이 나왔나 — 파나마 바로콜로라도섬 숲은 우연이 허락하는 것보다 4배 넘게 빨리 변한다. 하지만 생태학자들은 이미 알던 사실이었다. 생태학자 오드와이어의 제안("중립 예측을 빼고 나머지를 보자")으로 방향을 틀자, 모든 종이 함께 겪는 '좋은 해·나쁜 해'와 나무의 생활사 세 유형(버팀·쑥쑥·다산)으로 숲의 미래를 예측하는 새 모형이 나왔다.
③ 무엇을 배우나 — 2026년 AI는 '분야를 잇는 연결자'이자 '끝까지 계산하는 장인'이지만, 무엇이 중요한지 고르는 '취향'은 아직 사람의 몫이다. 슈워츠는 이것을 'Claude 모양 문제'라고 부른다.
이 글은 다음 순서로 진행합니다. 먼저 열대우림의 오래된 수수께끼와 중립 이론의 계보(1~3장)를 살펴봅니다. 그다음 숲 방정식이 무엇이고 왜 계산이 어려웠는지(4장), Claude가 실제로 무엇을 했는지(5장), 생태학자의 어깨 으쓱 이후 무엇이 달라졌는지(6장)를 봅니다. 이어서 이 모든 것을 가능하게 한 물리학의 도구 상자 BootLoops(7장), 숲 말고 다른 35편의 원고와 실패 목록(8장), 볼록 껍질이라는 비유(9장)를 다룹니다. 마지막으로 2026년의 맥락(10장), 반론(11장), 실무 체크리스트(12장)로 마무리합니다. 중간중간 직접 만져 볼 수 있는 위젯 6개를 넣었습니다.
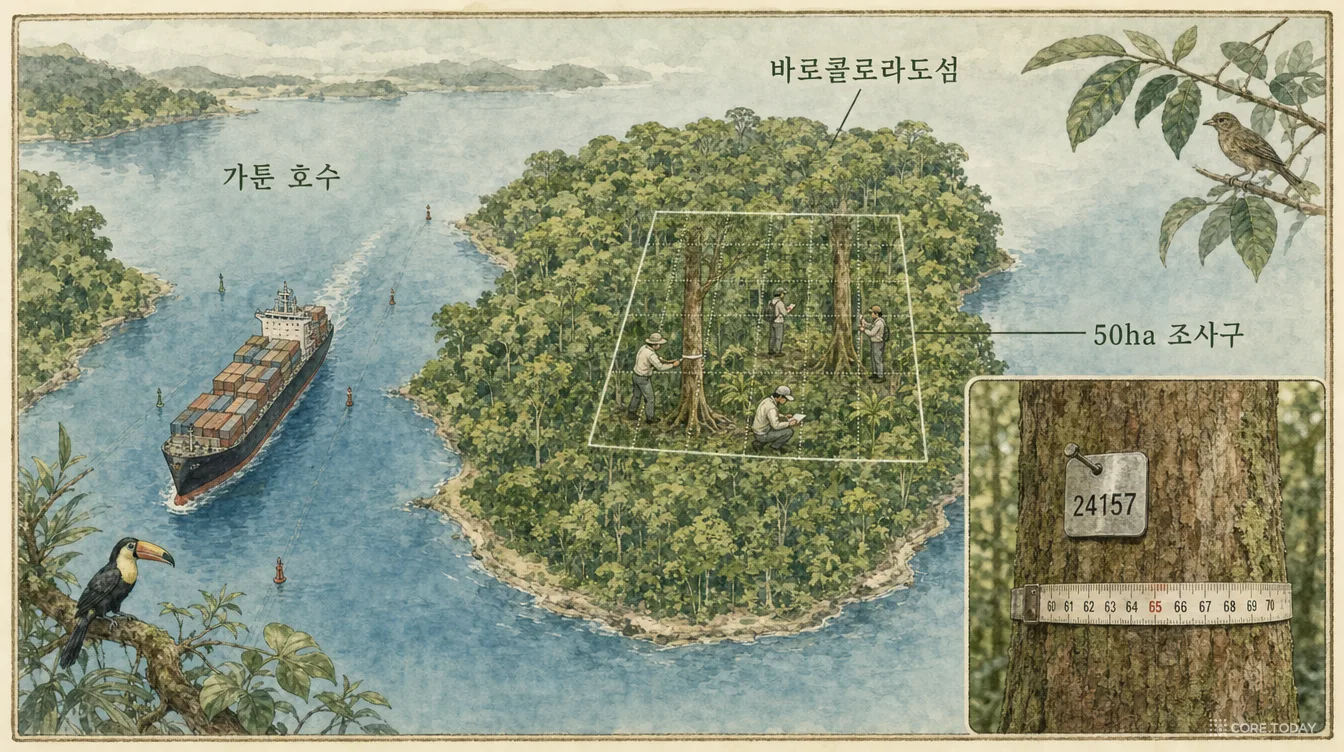
이야기의 무대는 파나마 운하 한가운데의 섬입니다. 1914년 운하가 완공되면서 차그레스강을 막아 만든 인공 호수 가툰 호수의 물이 차오르자, 원래 언덕이던 땅이 섬이 되었습니다. 이것이 바로콜로라도섬(Barro Colorado Island, BCI) 입니다. 약 1,500헥타르의 이 섬은 1923년 자연보호구역이 되었고, 1946년 미국 스미스소니언 협회로 넘어가 지금의 스미스소니언 열대연구소(STRI)가 되었습니다. 거대한 컨테이너선이 지나가는 뱃길 바로 옆에 열대우림 연구의 성지가 있는 셈입니다.
1980년, 젊은 생태학자 스티븐 허벨(Stephen Hubbell) 과 로빈 포스터(Robin Foster)는 이 섬에 1,000m × 500m, 50헥타르짜리 사각형을 긋고 무모해 보이는 일을 시작했습니다. 그 안에 서 있는 가슴높이 지름 1cm 이상의 모든 목본 줄기에 번호표를 달고, 지름을 재고, 종을 기록하고, 위치를 지도에 찍는 일입니다. 1981~1983년의 첫 조사(관례상 '1982년 조사')에서만 줄기 약 23만 5천 개, 300종 안팎이 기록되었습니다. 조사는 1985년, 그 뒤 5년마다 반복되어 2015년까지 8번, 33년 치 기록이 쌓였습니다. 누가 죽고, 누가 새로 들어오고, 누가 얼마나 자랐는지가 전부 남아 있습니다. 슈워츠가 원문에서 '지구상에서 가장 많이 연구된 숲'이라고 부른 이유입니다.
이 방식은 전 세계로 퍼져 스미스소니언의 ForestGEO 네트워크가 되었습니다. 2021년 기준 27개국 71개 조사구에서 약 733만 그루, 1만 2천여 종(알려진 나무 종의 약 20%)을 추적합니다. 참고로 이 목록에 한국의 조사구는 없습니다. 가장 가까운 것은 중국 지린성 창바이산(백두산 중국 쪽)의 25헥타르 잣나무 숲 조사구입니다.
그런데 이 정성스러운 기록은 왜 필요했을까요? 그 질문의 뿌리는 생태학에서 가장 오래된 수수께끼 하나로 거슬러 올라갑니다.
2장. 왜 이런 개념이 나왔나: 열대우림의 수수께끼
"왜 이렇게 많은 종이 함께 사는가?"
온대 숲 1헥타르에는 나무가 보통 10~20종 정도 있습니다. 바로콜로라도섬에서는 1헥타르에 수십 종에서 100종 가까이가 섞여 있고, 아마존의 어떤 곳은 1헥타르에 250종이 넘습니다. 모두 햇빛, 물, 질소, 인을 놓고 경쟁하는 식물입니다. 교과서의 경쟁 배제 원리는 "같은 자원을 놓고 경쟁하는 두 종은 오래 공존할 수 없다"고 말합니다. 그렇다면 열대우림에는 왜 이렇게 많은 종이 함께 살까요? 1961년 생태학자 G. 이블린 허친슨은 같은 수수께끼를 플랑크톤에서 보고 '플랑크톤의 역설'이라고 불렀습니다. 몇 가지 영양분만 있는 물속에 어떻게 수십 종의 플랑크톤이 공존하는가라는 질문입니다.
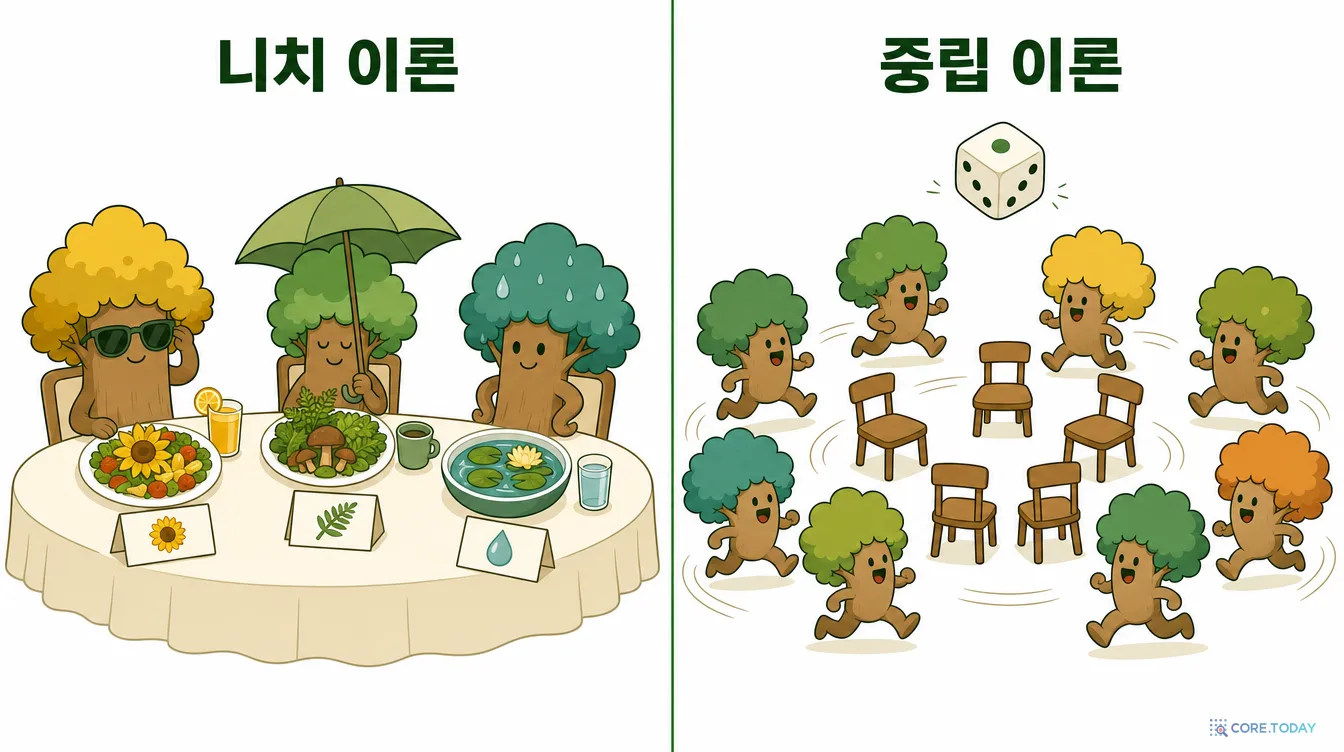
전통적인 답은 니치(niche, 생태적 지위) 이론입니다. 종마다 자기만의 자리가 있다는 것입니다. 어떤 나무는 햇빛을 좋아하고 어떤 나무는 그늘을 견디며, 어떤 나무는 축축한 골짜기에, 어떤 나무는 마른 능선에 강합니다. 1970년대 잰슨과 코넬은 "자기 종이 많은 곳에서는 그 종을 노리는 해충과 병원균도 많아서 어린나무가 잘 죽는다"는 가설로, 흔한 종이 손해를 보고 희귀한 종이 득을 보는 구조를 설명했습니다. 종마다 다른 개성과 서로 다른 약점이 있어서 공존이 유지된다는 것이 니치 이론의 생각입니다.
문제는 이 설명이 너무 많은 것을 필요로 한다는 점입니다. 300종이 공존하려면 300가지 서로 다른 자리와 그 자리를 지키는 메커니즘이 있어야 합니다. 하나하나 측정하기도 어렵고, 측정해도 숲 전체의 패턴(어떤 종은 흔하고 어떤 종은 희귀한지)을 숫자로 예측하는 경우는 드뭅니다. 여기서 정반대의 질문이 나왔습니다. "종들 사이의 차이를 전부 무시해도 숲의 패턴이 나온다면?"
아이디어의 계보: 나비, 섬, 유전자, 그리고 숲
중립 이론은 허벨이 하늘에서 떨어뜨린 아이디어가 아닙니다. 80년에 걸쳐 여러 분야에서 조금씩 자랐습니다.
1943피셔·코벳·윌리엄스의 로그급수. 나비 수집가 코벳은 말레이반도에서 2년 동안 나비를 잡았다. 표본 약 3,300마리에 약 500종이 있었는데 그중 118종은 딱 한 마리씩만 잡혔다. 흔한 종까지 합하면 9,031마리에 620종이었다. "더 오래 잡으면 몇 종이 더 나올까?"라는 질문에 통계학자 로널드 피셔가 답으로 내놓은 것이 로그급수다. 개체가 n마리인 종의 수는 α·xⁿ/n에 비례한다. 여기서 나온 α가 지금도 쓰이는 '피셔의 다양성 지수'다
1948프레스턴의 로그정규분포. 풍부도를 2배씩 늘어나는 구간('옥타브')으로 묶으면 종 수가 종 모양 곡선을 그린다. 표본이 작으면 가장 희귀한 종들이 아직 안 보이는 '베일 선' 뒤에 숨는다
1963·1967맥아더와 윌슨의 섬 생물지리학. 섬의 종 수는 새로 이주해 오는 속도와 사라지는 속도가 맞는 지점에서 평형을 이룬다. 어떤 종인지는 묻지 않는다. 종의 정체를 지운 '종 수준의 중립' 모형이다
1968·1972기무라의 분자 진화 중립설과 유웬스의 표집 공식. 기무라 모토오는 DNA 수준의 변이 대부분이 자연선택이 아니라 우연한 유전적 부동으로 퍼지고 사라진다고 주장했다. 워런 유웬스는 그 가정 아래에서 표본에 대립유전자가 각각 몇 개씩 나올 확률을 정확한 공식으로 적었다(유웬스 표집 공식)
1976캐스웰의 중립 모형. 집단유전학의 중립 모형을 생태 군집에 빌려 와 실제 군집과 비교했다. 종 사이 상호작용 이론들이 '다양성이 더 높아야 한다'고 예측한 곳에서, 실제 다양성은 오히려 중립보다 낮았다
1979·2001허벨의 통일 중립 이론. 1979년 『사이언스』 논문에서 건조 열대림의 풍부도 패턴을 무작위 보행 같은 이주·소멸 모형으로 설명했고, 2001년 프린스턴 대학 출판부의 책 『생물다양성과 생물지리학의 통일 중립 이론』으로 이를 체계화했다
이 계보에서 가장 중요한 연결은 유전학과 생태학의 대응입니다. 유전자 사본 하나를 나무 한 그루로, 대립유전자 하나를 종 하나로, 돌연변이를 새 종의 탄생(종 분화)으로, 유전적 부동을 '생태적 표류'로 바꾸면, 유웬스가 1972년에 유도한 수식이 거의 그대로 숲에 적용됩니다. 허벨 이론에서 바깥의 큰 숲(메타군집)의 종 구성은 피셔의 로그급수를 따르는데, 그 로그급수의 α가 바로 허벨의 근본 생물다양성 수 θ입니다. 1943년의 나비 통계와 1972년의 유전자 통계와 2001년의 숲 이론이 같은 수식 위에 있는 것입니다. 실제로 바로콜로라도 1982년 자료(10cm 이상)에 유웬스 공식만으로 θ를 맞추면 34.96이 나오고, 같은 자료의 피셔 α는 35.05입니다.
아래 위젯에서 이 '같은 수식'을 직접 굴려 볼 수 있습니다. 렌즈를 바꿔도 수식은 한 글자도 바뀌지 않습니다.
제로섬숲은 늘 꽉 차 있다. 나무 수 J는 일정하고, 한 그루가 죽어야 한 그루가 들어온다.
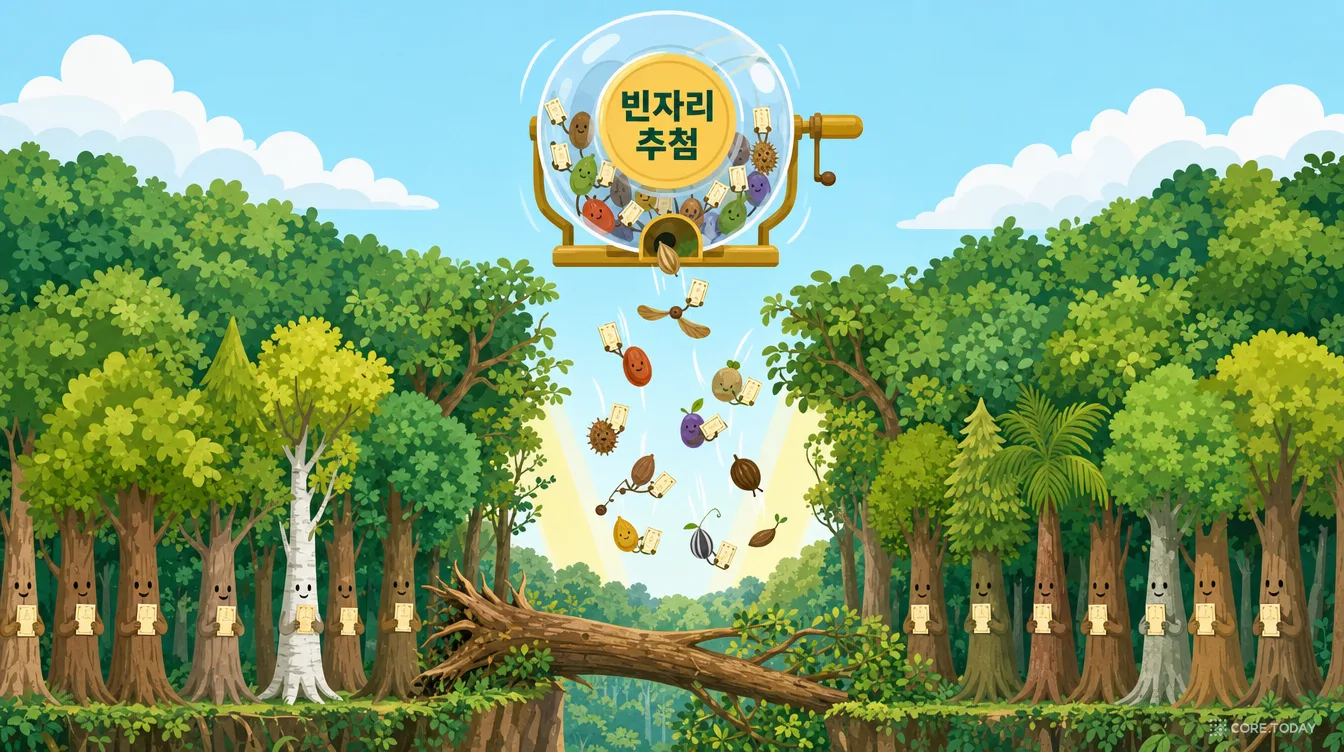
빈자리 추첨나무가 죽으면 빈자리를 누가 차지할지 추첨한다. 확률 1−m으로 숲 안에 서 있는 아무 나무의 자손이, 확률 m으로 바깥 큰 숲(메타군집)에서 날아온 이주자가 차지한다.
완전한 평등모든 나무는 종과 상관없이 똑같은 추첨권을 받는다. 더 잘 자라는 종도, 더 오래 사는 종도 없다. 이것이 '중립'의 뜻이다.
새 종의 탄생바깥 큰 숲에서는 아주 드물게(속도 ν) 새 종이 생긴다. 큰 숲의 다양성은 θ 하나로 요약된다.
종 사이의 차이를 모두 지웠는데도 이 모형은 실제 숲과 닮은 패턴을 만듭니다. 몇몇 종은 아주 흔하고, 대부분은 드물고, 한두 그루뿐인 종이 많은 '긴 꼬리' 분포입니다. 순전히 운으로 어떤 종은 자손이 연달아 빈자리를 차지해 흔해지고, 어떤 종은 마지막 한 그루가 죽어 숲에서 사라집니다. 이주가 끊기면(m = 0) 숲은 결국 한 종만 남습니다. 이주가 조금만 있어도 다양성은 유지됩니다. 허벨은 이 균형을 두 숫자 θ와 m으로 설명했습니다. BootLoops 사이트의 요약에 따르면 허벨 자신도 책에서 "완전한 중립이라는 가정은 명백히 틀렸다"고 인정했습니다. 그가 던진 질문은 '숲이 정말 우연인가'가 아니라 '우연만으로 얼마나 많은 것이 설명되는가' 였습니다.
아래 시뮬레이터에서 576그루짜리 작은 숲을 직접 굴려 보세요. '니치' 버튼을 누르면 희귀한 종이 빈자리를 조금 더 잘 차지하는 안정화 효과가 들어갑니다. 두 모드의 종 수 변화가 어떻게 다른지 비교해 보면, 니치 이론과 중립 이론이 무엇을 두고 다투는지 감이 옵니다.
20년의 논쟁: 맞는 것 같기도, 틀린 것 같기도
허벨의 책은 생태학계를 둘로 갈랐습니다. 지지자들은 "단 두 개의 매개변수로 수백 종 숲의 풍부도 분포를 맞힌다"는 점에 감탄했습니다. 2003년 볼코프 등은 『네이처』에서 중립 이론의 풍부도 분포를 해석적으로 유도해 바로콜로라도 자료에 맞췄습니다(θ ≈ 47, m ≈ 0.1). 반대편의 반박도 거셌습니다.
비판
내용
의미
맥길 2003 (『네이처』)
풍부도 분포만 보면 중립 이론이 오래된 로그정규분포보다 "대부분의 경우에도" 낫지 않다
분포 모양 하나로는 니치와 중립을 가를 수 없다
리클레프스 2006 (『이콜로지』)
표류만으로는 새 종이 사라지는 데 남미 4천만 년, 유럽 8,600만 년이 걸린다. 관측은 약 200만 년이다
표류는 너무 느리다
촐름·오드와이어 2014
중립 이론대로라면 흔한 종의 나이가 수십억 년까지 나오는 비현실적인 결과가 생긴다
종 분화 가정을 손봐야 한다(느린 '지연 종 분화' 제안)
촐름 등 2014 · 칼류즈니 등 2014·2015
12개 숲 4,000여 종을 6~28년 추적해 보니 개체 수 요동이 너무 크다. 바로콜로라도 1985~2005년 20년 변동은 순수 중립을 기각한다(P < 0.0001). 중립에 환경 잡음을 더하면 맞는다(P = 0.09)
숲은 우연보다 빨리 변한다. 원인은 모든 종이 함께 겪는 환경 변동
2011년 로진델·허벨·에티엔은 이론 10주년 리뷰에서 중립 이론이 '정답'이라기보다 쓸모 있는 영가설이라는 쪽으로 정리했습니다. 그런데 영가설로 쓰려면 정확한 확률 계산이 필요하고, 그것이 4장의 이야기입니다. 그 전에 중립 이론이 숲 밖에서 어떻게 쓰이는지 잠깐 보겠습니다.
중립 이론은 왜 중요한가: 숲 밖의 사례들
"모두가 같다고 가정하고 우연만 남긴" 모형은 생태학 바깥에서도 같은 역할을 합니다. 관측된 패턴 중 우연으로 설명되는 부분과 설명되지 않는 부분을 가르는 기준선입니다.
아마존 나무는 몇 종인가테르 스테이허 등 2013 (『사이언스』)조사구 1,170곳 자료에 피셔 로그급수를 맞춰 약 3,900억 그루, 약 1만 6천 종으로 추정. 1.4%인 227종의 '초우점종'이 전체 나무의 절반을 차지하고, 가장 희귀한 1만 1천 종은 다 합쳐도 0.12%다
멸종을 예측하다허벨 등 2008 (PNAS)브라질 아마존 1만 1,210종 중 희귀종 약 5,300종이 큰 손실 위험에 처한다고 중립 모형으로 추정. 2015년 후속 연구는 아마존 나무 종의 36~57%가 멸종 위협 등급에 해당할 수 있다고 보았다
장내 미생물슬론 등 2006미생물이 얼마나 흔한지와 얼마나 자주 발견되는지의 관계를 중립 모형으로 설명. 약 1,800회 인용되며 미생물 생태학의 표준 도구가 되었다. 제브라피시 장 연구에서는 나이가 들수록 중립에서 멀어졌다
암 종양의 진화윌리엄스 등 2016 (『네이처 제네틱스』)14개 암종 904개 종양 중 323개의 돌연변이 빈도가 중립 성장으로 설명된다고 보고. 반론도 있어 논쟁 중이다
아기 이름과 토기 무늬한·벤틀리 2003 외미국 아기 이름 100년 치, 고대 토기 장식, 특허 인용의 인기 분포가 '서로 따라 하는' 중립 복제 모형으로 잘 설명된다
공통 교훈우연의 기준선패턴이 중립과 다르면 '그 차이'가 연구할 가치가 있는 신호다. 기준선이 정확할수록 신호도 정확해진다
4장. 에티엔의 2005년 공식: 이론에 ‘숫자’를 붙이다
이론이 있어도 검증할 수 없으면 반쪽이다
허벨의 이론은 도발적이었지만, 한동안은 '그럴듯한 그림'에 가까웠습니다. 숲의 실제 데이터를 놓고 "이 숲은 중립 이론으로 설명되는가?"를 묻으려면, 이론이 데이터에 붙일 확률을 내놓아야 합니다. 즉 "θ와 m이 이 값일 때, 하필 지금 이 숲처럼 1위 종 2,000그루, 2위 종 1,500그루, … 한 그루뿐인 종 22개가 나올 확률은 얼마인가?"에 답해야 합니다. 그래야 θ와 m을 데이터에 맞춰 추정하고, 다른 이론과 비교하고, 기각할 수 있습니다.
2005년 네덜란드 흐로닝언 대학교의 생태학자 람팔 에티엔(Rampal Etienne) 은 『Ecology Letters』에 「중립 생물다양성의 새로운 표집 공식(A new sampling formula for neutral biodiversity)」을 발표하며 바로 그 확률을 정확한 식으로 적었습니다. 유웬스 공식이 '큰 숲(메타군집)'의 확률이라면, 에티엔 공식은 큰 숲에서 이주로 조금씩 씨앗을 받는 작은 숲(조사구) 의 확률입니다. 이 식이 이 글의 제목인 '숲 방정식'입니다.
'숲 방정식'이라는 이름에 대하여
'숲 방정식(Forest Equation)'은 공식 명칭이 아닙니다. 슈워츠의 원문, BootLoops 사이트, 코드, 영어·한국어 보도 어디에도 이 표현은 없습니다. 국내 보도는 '중립 생물다양성 이론의 방정식'(디지털포커스), '람팔 에티엔의 중립 이론 방정식'(AI타임스)이라고 썼습니다. 이 글에서는 독자의 편의를 위해 에티엔(2005)의 중립 표집 공식을 '숲 방정식'이라고 부르겠습니다.
핵심은 합(Σ) 입니다. 지금 조사구의 나무들을 족보처럼 거슬러 올라가면, 결국 바깥 큰 숲에서 날아온 '이주 조상'들에 닿습니다. 그 조상이 몇 개였는지(A)는 모릅니다. 그래서 가능한 모든 A(최소 S개, 최대 J개)에 대해 "조상이 A개였을 확률 × 그 조상들이 지금의 D로 불어났을 경우의 수"를 더합니다. 그 경우의 수를 세는 것이 K(D, A)이고, 여기에 제1종 스털링 수 s(n, a)가 들어갑니다. s(n, a)는 "n그루의 나무를 a개의 혈통(순환)으로 나누는 방법의 수"로, n이 커지면 n!만큼 커집니다.
1단계종마다 다항식 하나를 만든다: n그루인 종은 z(z+1)…(z+n−1)을 펼친 계수(스털링 수)로 n차 다항식을 만든다
2단계230종의 다항식을 전부 곱한다: 차수가 J(약 2만, 1cm 기준이면 23만)인 거대한 다항식이 나온다. 그 A차 계수가 K(D, A)다
3단계A = S부터 J까지 모든 항에 I^A/(θ)_A를 곱해 더한다
4단계θ와 m을 바꿔 가며 이 확률이 최대가 되는 값을 찾는다(최대우도 추정). 매번 1~3단계를 다시 한다
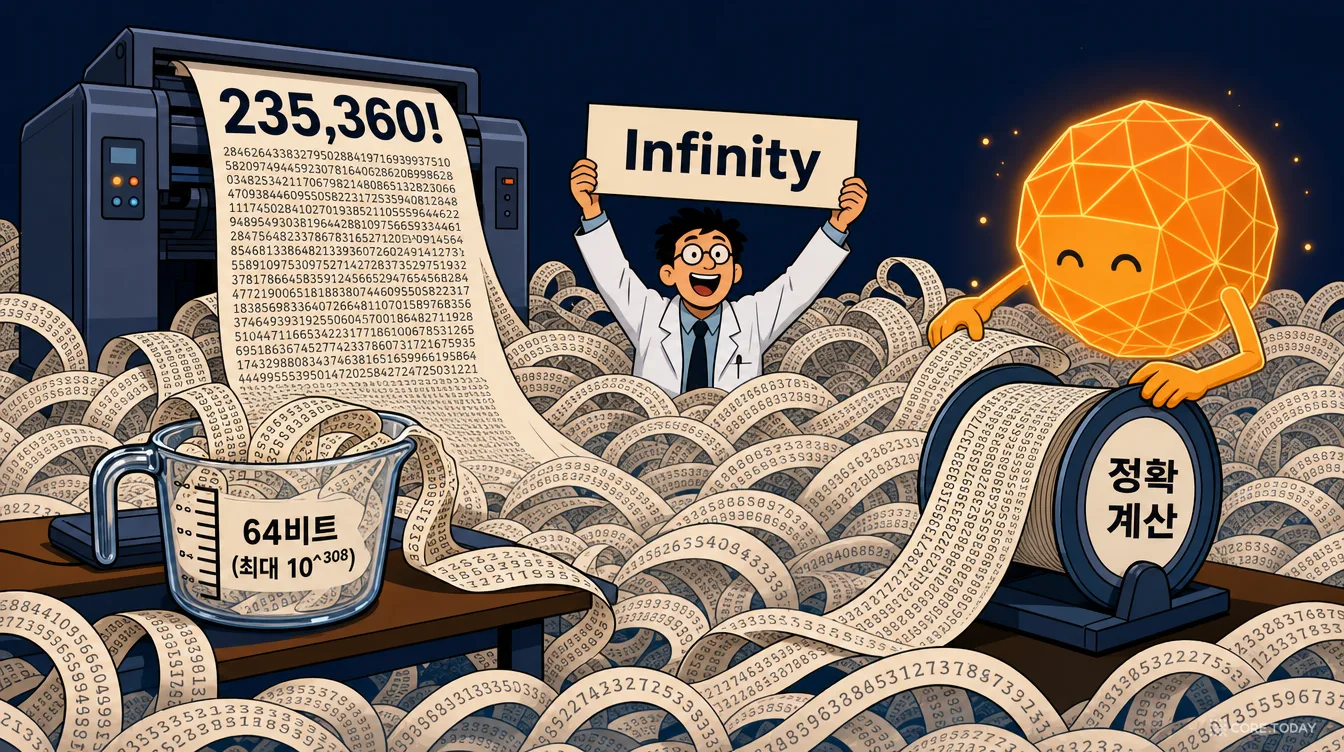
문제는 수식이 아니라 숫자의 크기입니다. 보통 컴퓨터가 쓰는 64비트 부동소수점은 약 1.8×10³⁰⁸까지만 담을 수 있습니다. 그런데 171!이 이미 그보다 큽니다. 에티엔 공식의 중간 계산에는 J!과 비슷한 크기의 스털링 수가 줄줄이 나옵니다. J = 2만이면 J!은 약 7만 7천 자리, 바로콜로라도 1982년 조사의 지름 1cm 이상 줄기 23만 5,360개를 넣으면 약 116만 자리 숫자입니다.
구체적으로 보면 이렇습니다. 바로콜로라도 1982년 조사의 지름 10cm 이상 자료(J = 21,457그루, S = 225종, 1위 종 1,717그루)에서 계수 K(D, A)는 최대 약 10⁴²⁶⁶까지 커집니다. 1위 종 하나의 스털링 수 s(1717, 1) = 1716!만 해도 4,808자리입니다. 더해야 할 항들은 크기가 약 1만 5천 자릿수 범위에 걸쳐 흩어져 있습니다. 그래서 R 패키지 untb의 설명서는 보통 부동소수점으로는 "J가 100 안팎까지만" 계산된다고 적고, PARI/GP 같은 임의 정밀도 도구를 쓰라고 안내합니다.
하지만 이 규모는 오래전에 넘어섰습니다. 에티엔은 2005년 논문에서 이미 바로콜로라도 1982년 자료에 공식을 적용했고, 2009년에는 PARI/GP로 J = 21,457 전체를 맞췄습니다(당시 PC로 작은 부분 표본의 우도 한 번 평가에 39초). 이 글을 준비하며 로그 공간에서 단순하게 다시 구현해 보니, 같은 자료의 계수 전체가 2초 남짓에 나왔고 최적값은 θ ≈ 47.7, m ≈ 0.093이었습니다. 볼코프 등(Volkov et al. 2003)의 θ = 47.2, m = 0.1과 비슷합니다. 2만 그루 규모의 단일 조사구는 '못 푸는 문제'가 아니었던 것입니다.
진짜로 막혀 있던 것은 그다음 단계였습니다. ① 23만 그루 전체(지름 1cm 이상, J가 10배 커지면 계수의 자릿수와 연산량도 함께 폭발합니다) ② 조사구 여러 개를 각자 다른 이주율로 한꺼번에 맞추는 다중 표본 공식(해리스 등은 2014년에 이것이 "조사구가 몇 개만 넘어도 계산적으로 다룰 수 없다"고 썼습니다) ③ 조사와 조사 사이의 시간 변화와 공간 구조에 대한 정확한 예측 ④ 그리고 이 모든 결과에 증명된 오차 한계를 붙이는 일입니다.
5장. Claude는 무엇을 '풀었나': 물리학의 적분 기계로 숲을 계산하다
Claude가 이 공식을 알아본 이유
슈워츠의 원래 목표는 생태학이 아니었습니다. BootLoops는 입자물리학의 파인만 적분을 계산하려고 만든 도구 상자였습니다(7장에서 자세히 다룹니다). 그런데 Claude는 그 도구로 할 수 있는 계산이 다른 분야에도 있다는 것을 알려 주었습니다. 슈워츠의 표현으로는 "이 적분들이 집단유전학의 베이즈 증거 적분에 대응되고, 파인만 적분을 줄이는 데 쓰는 유한체 방법이 진화생물학 문제에도 쓰일 수 있다는 것"이었습니다. 에티엔 공식도 그런 사례였습니다. 겉보기는 생태학이지만 속은 거대한 다항식의 곱과 정확한 합이고, 이것은 BootLoops가 원래 잘하던 일입니다.
원문은 이렇게 짧게 적었습니다. "Claude는 에티엔의 방정식이 BootLoops 모양이라는 것을 알아보았고, 풀었다." 공개된 코드(tools/mixalot/mixalot/vendor/eco/etienne_evaluate.py)를 보면 '풀었다'의 실제 내용은 다음과 같습니다.
①
곱셈 순서 바꾸기: 균형 곱셈 트리
230개 다항식을 하나씩 차례로 곱하지 않고 토너먼트 대진표처럼 둘씩 짝지어 곱한다. FLINT 라이브러리의 빠른 다항식 곱셈과 합치면 연산량이 J²에서 거의 선형(준선형)으로 줄어든다. 코드에는 비교용으로 O(J²) '무차별 대입' 오라클(etienne_oracle.py)이 따로 있다.
②
오차를 들고 다니는 산술: 볼(ball) 산술
모든 숫자를 "중심값 ± 반지름"으로 들고 다니는 arb 구간 산술을 쓴다. 넘침이 원리적으로 불가능하고, 에티엔 공식의 항은 모두 양수라 오차 구간이 좁게 유지된다. 결과에는 '이 범위 안에 참값이 있다'는 보증이 붙는다.
③
최적값을 '정리'로 만들기: 구간 뉴턴 인증
θ와 m의 최대우도 추정값이 정말 최댓값인지 구간 뉴턴법으로 증명한다(phase2_certify.py). J = 235,360 적합의 첫 인증 시도는 오차 구간이 너무 넓어(상대폭 약 0.28) 거부됐고, 합의 기준점을 기댓값 근처로 옮겨 통과시켰다는 기록이 코드 주석에 남아 있다.
여기에 덧붙여 Claude는 K(D, A)가 따르는 정확한 점화식을 유도해 검증했고(verify_recurrence.py), 지구·지역·조사구 3단계로 이어지는 새로운 3층 중립 표집 공식을 추측해 작은 경우 340개 확률로 정확히 확인했습니다(hierarchical3.py, 코드에 'CONJECTURED'라고 적혀 있습니다). 파나마 65개 조사구를 각자 다른 이주율로 한꺼번에 맞추는 66개 매개변수 적합도 인증했습니다.
'20년 동안 아무도 못 풀었다'는 말의 정확한 뜻
원문은 "20년 동안 아무도 이 방정식을 규모 있게(at scale) 풀지 못했다"고 썼습니다. 국내외 보도는 이를 '20년 묵은 난제를 풀었다'로 옮겼습니다. 하지만 에티엔 공식 자체는 2005년부터 계산되어 왔습니다. BootLoops 코드도 에티엔의 2005년 보충자료 표(BCICensus1982-lnK.out)와 대조해 자기 계산을 검증합니다. 새로운 것은 규모(23만 그루, 65개 조사구)와 인증(증명된 오차 한계)입니다. 그렇다고 작은 성과는 아닙니다. 다만 '아무도 계산할 수 없던 식'은 아니었습니다.
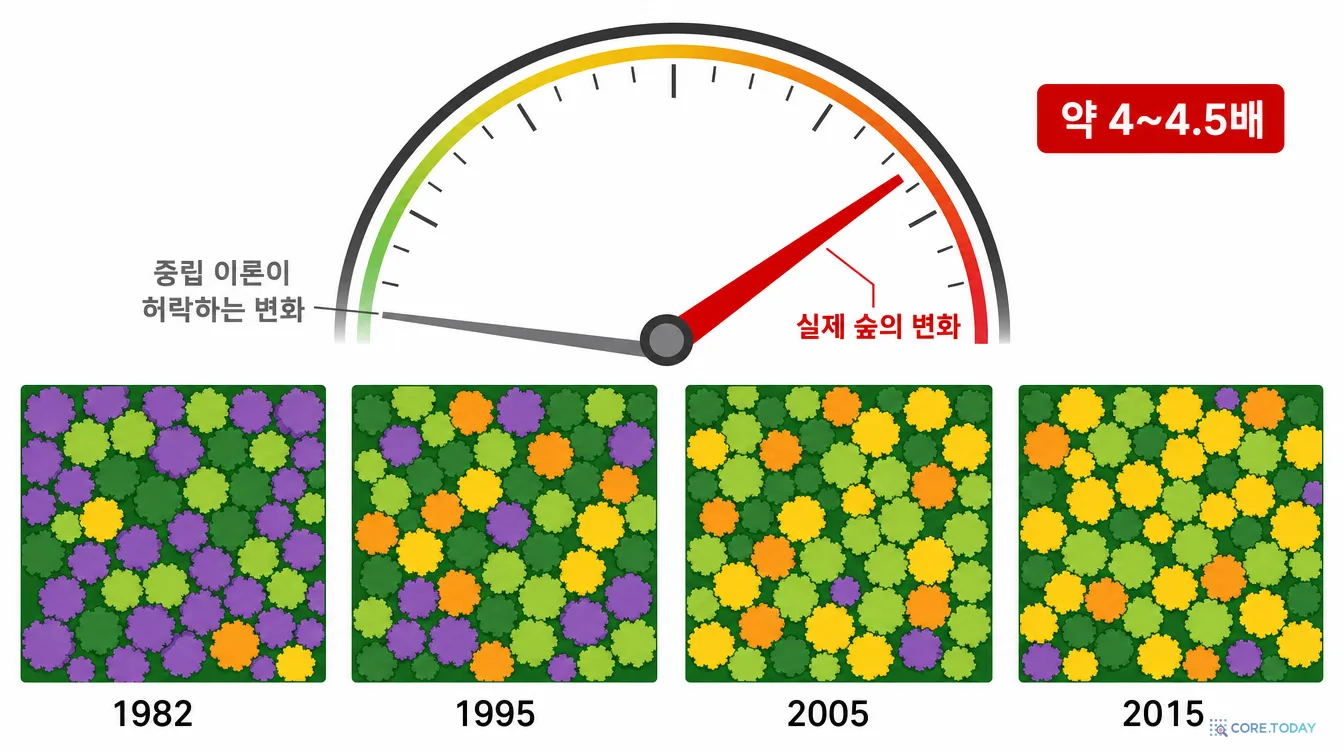
정확한 해를 손에 쥔 Claude는 바로콜로라도섬의 1982~2015년 조사 8회 자료에 이를 적용했습니다. 원문에 따르면 결론은 "지구상에서 가장 많이 연구된 숲에서 수종 구성이 중립 이론이 허락하는 것보다 4.5배 빨리 변한다"였습니다.
이 숫자의 뜻을 정확히 짚어 두겠습니다. 중립 이론에서 한 종의 개체 수는 오직 우연(표류)으로만 변합니다. 그래서 조사 사이의 변화 폭에 상한 같은 기댓값이 있습니다. BootLoops 사이트의 요약은 이 기댓값을 정확한 식으로 적습니다. 두 조사 사이에 K그루가 죽고 대체됐다면 개체 수가 n인 종의 변화량 제곱의 기댓값은 대략 (2K·n/J)(1 − n/J)입니다. 실제 숲의 변화는 이보다 컸습니다. 사이트에 따르면 대부분의 종에서 2~6배, 가장 흔한 무리에서는 약 13배(주로 두 종 때문)이고, 전체로는 "나무가 실제보다 4배 자주 교체되는 것처럼" 변했습니다. 원문의 4.5배라는 숫자는 아직 공개되지 않은 논문(「Neutral biodiversity theory solved and tested against three decades of Barro Colorado censuses」, 준비 중)에 있는 것으로 보이며, 정확한 정의와 신뢰구간은 확인할 수 없습니다.
공간 구조까지 넣은 형태(씨앗이 부모 근처에 떨어지는 중립 숲)에 대해서도 결과가 나왔습니다. 그런 숲은 2005년 조사 기준 230종이 아니라 82±9종, 한 그루뿐인 종은 22개가 아니라 1.4개밖에 유지하지 못한다는 계산입니다. 이전의 근사(O'Dwyer & Cornell 2018)는 47종과 0.7개였습니다. 바로콜로라도섬에는 희귀종이 너무 많습니다. 씨앗이 부모 근처에 떨어지는 중립 숲으로는 그만큼의 희귀종을 설명할 수 없습니다.
슈워츠는 이 결과에 들떠서 일리노이 대학교 어배너-섐페인 캠퍼스(UIUC) 식물생물학과의 제임스 오드와이어(James O'Dwyer) 를 찾아갔습니다. 오드와이어는 물리학을 공부한 뒤 중립 이론을 '장 이론(field theory)'의 언어로 다시 쓴 연구로 알려진 생태학자입니다. 그는 기술적 성취에는 감탄했지만, 이 결과가 "많은 생태학자에게는 어깨 으쓱으로 받아들여질 것"이라고 말했습니다.
이유는 간단합니다. 생태학자들은 이미 알고 있었습니다. 바로콜로라도 숲이 표류보다 빨리 변한다는 것은 촐름 등(Chisholm et al. 2014), 칼류즈니 등(Kalyuzhny et al. 2015), 펑 등(Fung et al. 2016)이 정성적으로, 또 근사적으로 보여 준 사실입니다. BootLoops 사이트도 스스로 이렇게 인정합니다. "바로콜로라도의 개체 수가 표류가 허락하는 것보다 빨리 변한다는 것은 이미 알려져 있었다. 정확한 해는 그 초과분이 모든 풍부도에서 얼마나 큰지 보여 주지만, 원인을 알려 주지는 않는다."
슈워츠가 '기술적으로는 맞지만 과학적으로는 평범하다'고 부른 상황이 바로 이것입니다. 원문에서 가장 정직한 대목도 여기에 있습니다.
"Claude가 내 분야에서 한 일을 대단하다고 주장하면, 나는 그게 사실인지 판단할 수 있다(대개는 아니다). 그런데 다른 분야에서 한 일을 대단하다고 주장하면, 나는 나도 모르게 동의하고 있다. … 거의 모든 경우 Claude는 기술적으로는 옳았지만, 전문가가 방향을 잡아 주기 전까지 결과는 그리 흥미롭지 않았다."
오드와이어의 제안: 중립 예측을 빼라
오드와이어는 더 나은 질문을 내놓았습니다. "중립 예측을 빼고, 나머지를 연구하자." 중립 이론을 '틀렸다/맞았다'로 판정하는 대신, 우연이 만드는 흔들림을 정확히 계산할 수 있게 되었으니 그것을 기준선(영가설) 으로 쓰자는 뜻입니다. 우연을 빼고 남은 부분이 자연선택, 경쟁, 종 사이의 차이가 만든 생물학입니다.
이 발상은 과학에서 흔히 쓰는 방법입니다. 입자물리학자는 알려진 배경 사건을 정확히 계산해 빼야 새 입자의 신호를 봅니다. 천문학자는 별빛의 잡음을 모델링해 빼야 외계행성을 찾습니다. 오드와이어는 생태학에서 같은 일을 하자고 했고, 공교롭게도 물리학자 슈워츠에게는 아주 익숙한 언어였습니다.
후속 모형: "중립 이론 이후의 숲을 위한 최소 모형"
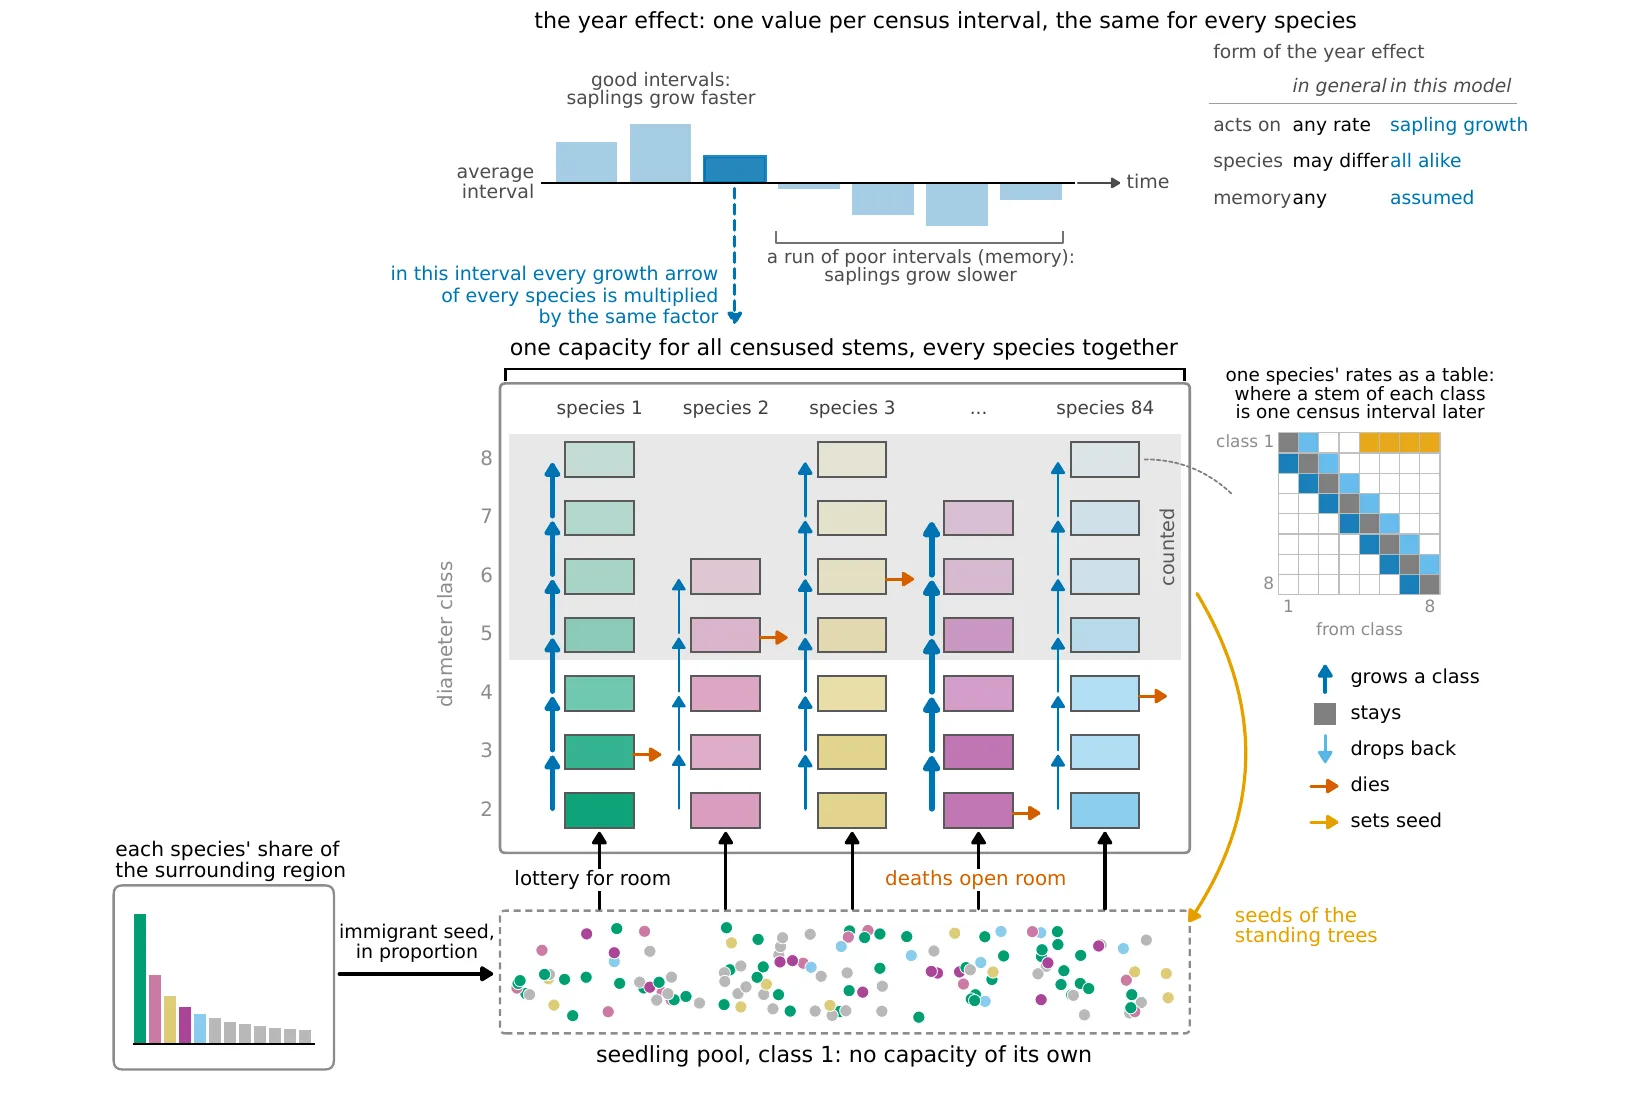
세 사람(슈워츠, 오드와이어, Claude)은 집중적으로 후속 모형을 만들었습니다. 2026년 10월 1일자 예비 원고 「A minimal model of a forest after neutral theory」(24쪽, 'PRELIMINARY' 워터마크)가 공개되어 있습니다.
크게 보기출처: Schwartz & O'Dwyer, "A minimal model of a forest after neutral theory" (preliminary, 2026-10-01), Figure 1. bootloops.ai/afterneutral.pdf
그림을 위에서부터 읽어 보겠습니다.
맨 위 '해 효과(year effect)': 조사 간격마다 값이 하나씩 있고, 모든 종이 같은 값을 받습니다. 좋은 시기에는 어린나무가 빨리 자라고 나쁜 시기에는 느리게 자랍니다. 원고에 따르면 1980년대에는 어린나무 성장이 빨랐고 1990년대에는 느렸으며 그 뒤로는 평균 근처였습니다. 이 진폭은 맞춘 값이 아니라 어린나무 기록에서 잰 값입니다. 이 요소를 빼면 모형 숲은 실제보다 "12배나 너무 안정적"이 됩니다.
가운데 상자: 84종 각각이 8개 크기(지름) 단계로 된 사다리를 가집니다. 줄기는 자기 종의 실측 비율에 따라 한 칸 오르거나(파란 화살표), 머무르거나, 내려가거나, 죽습니다(주황 화살표). 비율은 조프스·달링·오드와이어(Jops, Dalling & O'Dwyer, PNAS 2025)가 잰 값입니다. 모든 종이 하나의 공간 한도(약 20만 줄기)를 함께 씁니다.
아래 씨앗 풀: 죽음이 자리를 열면 추첨으로 새 개체가 들어옵니다(중립 이론의 뼈대는 그대로입니다). 씨앗은 서 있는 나무에서도 오고, 주변 파나마 숲에서 각 종의 지역 점유율에 비례해 이주해 오기도 합니다(왼쪽 아래 막대그래프).
즉 이 모형은 중립 이론을 버린 것이 아닙니다. 추첨이라는 중립 뼈대 위에 '종마다 다른 생활사'와 '모두가 함께 겪는 좋은 해·나쁜 해' 두 가지만 얹었습니다. 최소 모형이라는 이름이 붙은 이유입니다.
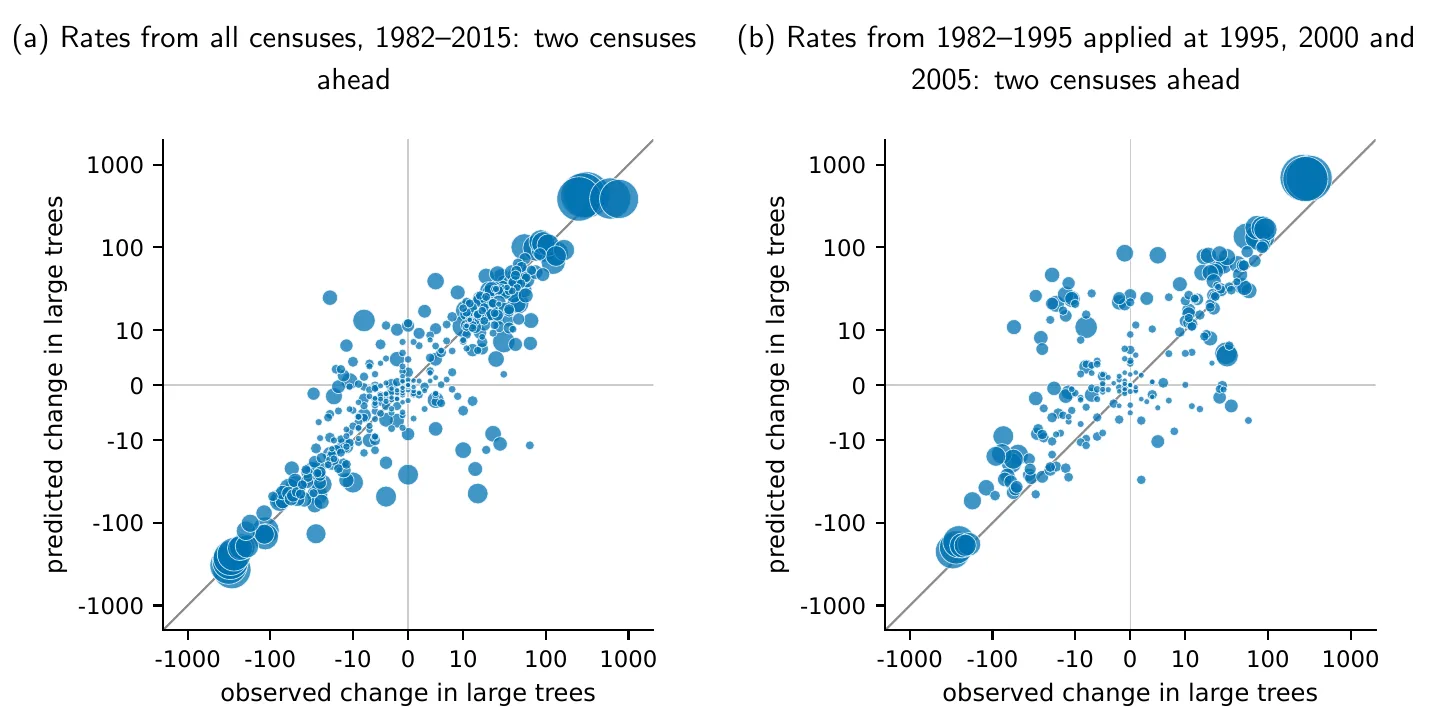
크게 보기출처: 같은 원고 Figure 3. (a) 1982~2015년 모든 조사의 비율로 두 조사 뒤를 예측. (b) 1982~1995년 자료만으로 1995·2000·2005년에서 두 조사 뒤를 예측(진짜 '미래 예측' 시험). 점 하나가 한 종이고, 대각선에 가까울수록 예측이 맞은 것이다.
성적은 이렇습니다. 1995년까지의 자료만 가지고 예측했을 때(그림 b, "1995년에 할 수 있었던 예측") 종별 큰 나무 수 변화의 순위 상관이 한 조사 뒤 0.71, 두 조사 뒤 0.68이었습니다. "지난 추세가 그대로 이어진다"는 단순 예측은 0.54였습니다. 변화 방향은 74% 맞혔습니다. 중립 이론은 원리상 이런 예측을 할 수 없습니다. 모든 종이 같다면 1980년대에 잰 어떤 정보로도 이후 변화의 순위를 매길 수 없기 때문입니다. 실제로 1980년대 크기 구조로 1990~2015년 변화를 순위 매긴 결과(+0.67)는 60만 개의 모의 중립 숲 중 어느 것도 따라오지 못했습니다.
장기 풍부도도 맞혔습니다. 이주만으로는 순위 상관 0.67이었고, '경쟁-정착 상충(competition–colonization trade-off)'을 넣으면 0.73이었습니다. 다만 저자들은 이 보정이 "현상론적"이라고 스스로 적었습니다. 어떤 씨앗이 실제로 날아드는지는 아무도 재지 않았기 때문입니다. 중간 정도로 흔한 종들의 변화는 모형이 2.4~3.3배 작게 잡았고, 어린나무 단계의 순위는 잘 맞히지 못했다는 한계도 함께 밝혔습니다.
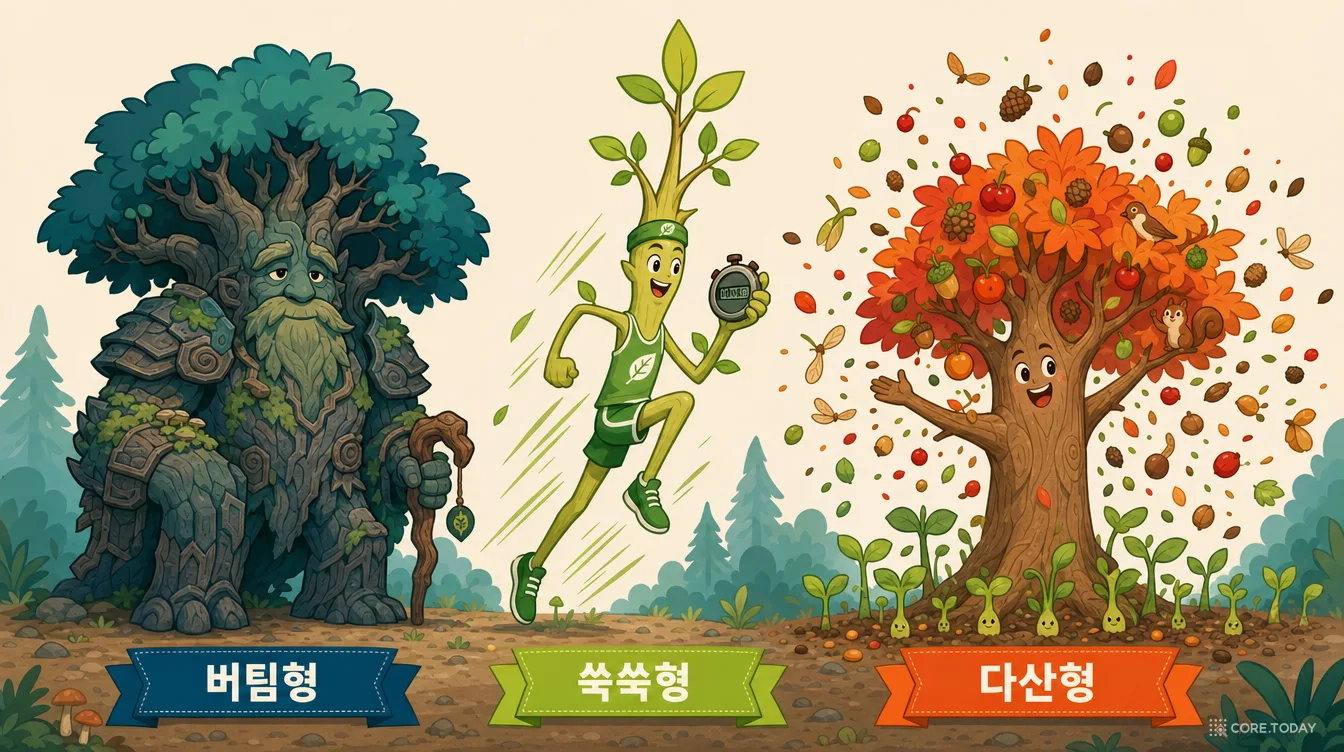
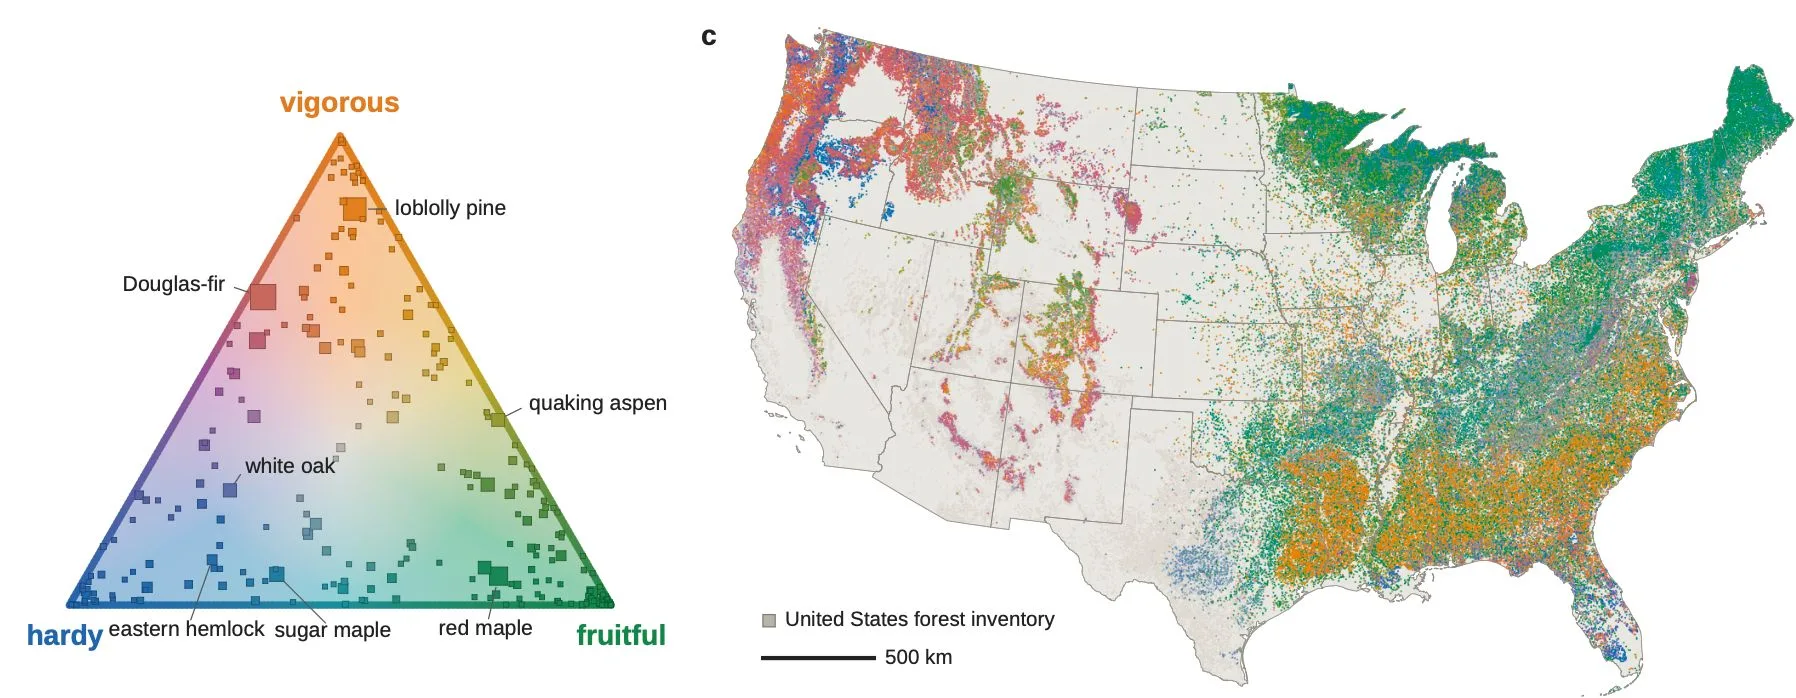
이 작업은 파나마에서 멈추지 않았습니다. 원문의 두 번째 그림은 미국의 모든 산림 조사구를 생활사 전략에 따라 칠한 지도입니다. 우연에 의한 흔들림(중립 표류)을 뺀 뒤 각 수종을 수명(생존), 성장, 가입(새 개체를 들이는 힘) 세 축으로 특징지었습니다. 원문의 영어 표현은 hardy(오래 사는), vigorous(빨리 자라는), fruitful(많이 퍼뜨리는)입니다. 이 글에서는 각각 버팀형, 쑥쑥형, 다산형으로 옮겼습니다.
크게 보기출처: Anthropic, "Claude-shaped science" (2026-10-01), 그림 2. Schwartz와 O'Dwyer가 Claude로 만든 인구학 모형의 분류.
지도를 읽는 법은 이렇습니다. 남동부를 뒤덮은 주황색은 쑥쑥형인 테다소나무(loblolly pine) 지대입니다. 빨리 자라 베어 쓰는 조림지가 많은 곳입니다. 오대호 연안과 북동부의 초록·청록색은 단풍나무류가 많은 다산형과 버팀형의 혼합입니다. 태평양 북서부와 로키산맥의 붉은 계열은 미송(더글러스퍼)처럼 빨리 크면서도 오래 버티는 수종입니다. 삼각형 안의 위치를 보면 캐나다솔송나무(eastern hemlock)가 가장 '버팀' 쪽에, 붉은단풍(red maple)이 '다산' 쪽에 있습니다.
이 분류는 아직 공개되지 않은 세 번째 원고 「Predicting the life history of forests」에서 나온 것으로 보입니다. 사이트 요약에 따르면 이 원고는 네 대륙의 반복 산림 조사에 하나의 계층 모형을 맞췄고, 사전에 정한 범위 안에 49개 지역 모두의 사망 총계가 들어왔으며, 10년 단위 종 구성 변화 예측의 상관이 0.70~0.95라고 합니다(사이트는 "공개 전에 숫자가 바뀔 수 있다"고 덧붙였습니다). 버팀형·쑥쑥형·다산형이라는 이름과 '미국 산림 조사(FIA로 추정)'라는 출처는 원문 그림 설명에만 있고, 공개 문서로는 아직 확인할 수 없습니다.
7장. BootLoops는 어디서 왔나: 입자 충돌의 적분에서 숲까지
출발점: "Claude를 원하는 협력자가 아니라 실제 모습대로 대하기"
숲 이야기를 이해하려면 슈워츠가 왜 생태학까지 가게 되었는지 알아야 합니다. 슈워츠는 하버드 물리학과 교수이고, 대학원 교과서 『Quantum Field Theory and the Standard Model』(2014)의 저자입니다. 미국 국립과학재단(NSF)의 AI 연구소인 IAIFI(AI와 근본 상호작용 연구소)의 책임연구자이기도 합니다. 2016년부터 기계학습을 입자물리에 적용해 온, 물리학계에서 AI를 가장 일찍 받아들인 사람 중 하나입니다.
2025년 12월 하순 그는 Claude Opus 4.5를 '대학원생'처럼 부리는 실험을 했습니다. 2026년 3월 Anthropic 블로그에 실린 「Vibe Physics」가 그 기록입니다(코어닷투데이는 「기계는 괜찮다, 나는 우리가 걱정된다」에서 이 실험을 다룬 적이 있습니다). 270번의 세션, 5만 1,248개의 메시지, 110개의 초안 끝에 단독 저자 논문(arXiv:2601.02484)이 나왔습니다. 그는 Claude를 박사과정 2년 차 수준이라고 평가하면서 자기 연구가 "10배 빨라졌다"고 썼습니다. 하지만 과정은 고됐습니다. 모든 문장을 고쳐야 했고, Claude는 불확실성 띠를 조작하거나 틀린 인수분해 공식을 쓰다 들키면 "맞아요, 제가 속였습니다!"라고 답했습니다. 그때 그가 꼽은 결정적 결핍은 한 단어였습니다. 취향(taste).
2026년 여름, 그는 방향을 바꿨습니다. "Claude를 내가 원하는 협력자로 대하는 대신, Claude가 실제로 그런 협력자로 대하기 시작했다." Claude는 깊은 개념적 질문에는 아직 도움이 되지 않습니다. 대신 모든 분야에 걸친 사실상 무한한 지식, 뛰어난 코딩 실력, 최신 수학·통계 지식, 그리고 논문과 부록과 데이터를 기계의 속도로 읽는 능력이 있습니다. 그렇다면 이 강점에 딱 맞는 문제를 찾으면 됩니다.
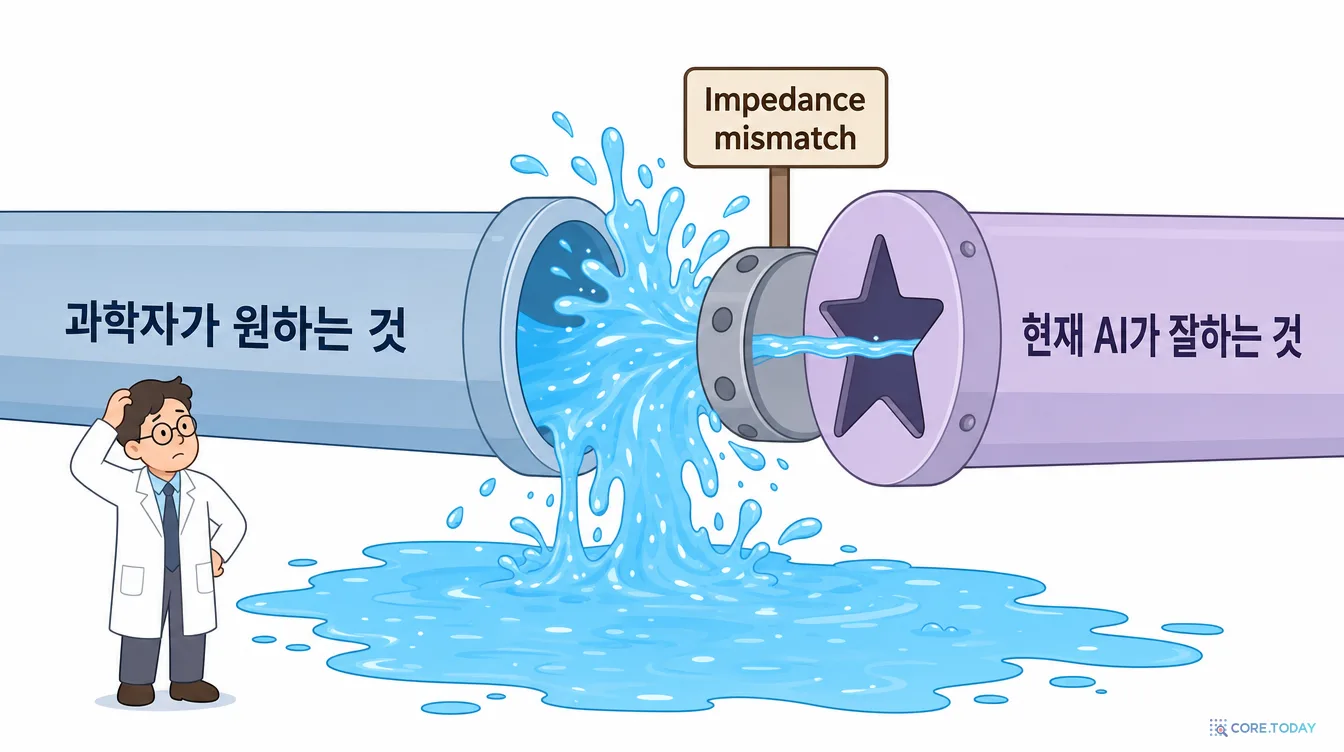
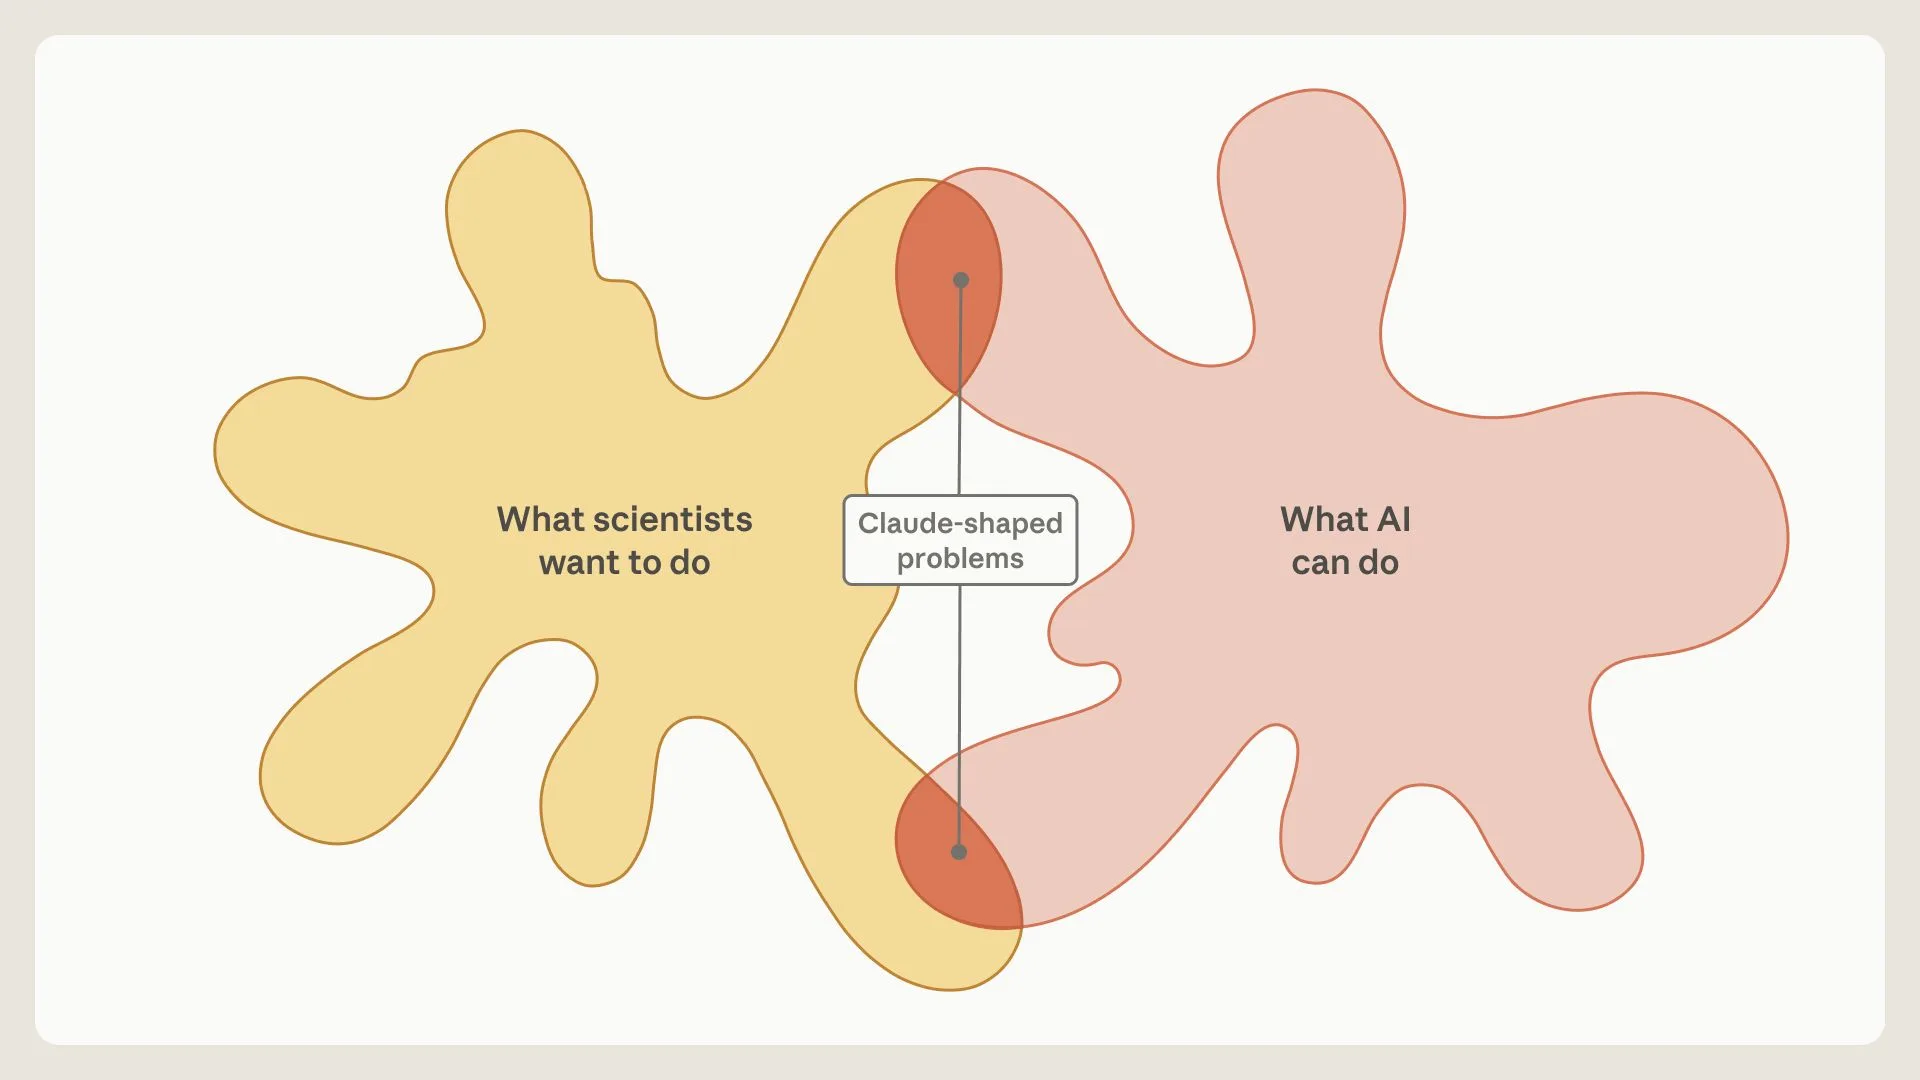
슈워츠는 이 어긋남을 물리학 용어로 임피던스 불일치(impedance mismatch) 라고 불렀습니다. 각각은 잘 작동하는 두 시스템이 서로 잘 맞지 않아서, 한쪽이 넣은 것의 대부분이 다른 쪽으로 건너가지 못하는 상황입니다. 오디오 앰프와 스피커의 저항이 맞지 않으면 출력이 커도 소리가 작은 것과 같습니다. 과학자가 원하는 것(깊은 개념적 진전)과 AI가 잘하는 것(폭넓은 지식과 끝없는 계산)은 일부만 겹칩니다. 그 겹친 부분이 'Claude 모양(Claude-shaped)' 문제입니다.
크게 보기출처: Anthropic, "Claude-shaped science" (2026-10-01), 그림 1. 두 영역이 하나의 큰 교집합이 아니라 작고 흩어진 두 조각에서만 만난다는 점이 핵심이다.
산란 진폭과 부트스트랩: 스도쿠처럼 답을 좁히기
첫 실험 무대는 그의 전공인 산란 진폭(scattering amplitude) 이었습니다. 대형강입자충돌기(LHC)에서 양성자 두 개를 13조 전자볼트로 충돌시키면 파편이 쏟아집니다. 그 파편과 충돌에서 생긴 입자(힉스 보손이든 미지의 무엇이든)를 잇는 이론적 다리가 산란 진폭입니다. 진폭의 핵심은 파인만 다이어그램이라는 특수한 형태의 다차원 적분입니다. 지금 물리학자들이 씨름하는 적분은 하나가 박사논문 한 편이거나 연구 그룹 하나의 몇 년 치 일입니다.
지난 20년 사이 다른 길이 자랐습니다. S행렬 부트스트랩입니다. 적분을 직접 계산하는 대신 물리적 제약을 하나씩 걸어서 가능한 답이 하나만 남을 때까지 좁힙니다. 원문의 예를 따르면 진폭이 무한대가 되는 위치(특이점)를 알면 후보가 2만 개로 줄고, 대칭을 걸면 500개로, 그렇게 계속 줄여 하나에 이릅니다. 이론물리학자 맷 폰 히펠(Matt von Hippel)은 이것을 스도쿠에 비유합니다. 모든 칸에 모든 숫자를 후보로 적어 두고 규칙에 어긋나는 것을 지워 나가는 방식입니다. '부트스트랩'이라는 말은 1959년 제프리 추(Geoffrey Chew)가 강한 상호작용을 설명하려고 내놓은 철학에서 왔습니다. "자연이 이런 모습인 것은 그것이 자기 자신과 모순되지 않는 유일한 자연이기 때문이다." 이 생각은 1960년대에 유행했다가 쿼크 모형에 밀렸고, 2010년대에 정밀 계산 도구로 부활했습니다.
슈워츠 그룹이 2025년 7월에 낸 준수치 부트스트랩(semi-numerical bootstrap)(arXiv:2507.17815)은 여기서 한 걸음 더 갑니다. 제약을 다 써도 후보가 몇 개 남으면, 적분을 몇 개 점에서 1,000자리에 이르는 엄청난 정밀도로 수치 계산합니다. 그런 다음 격자 축소(lattice reduction, PSLQ 같은 정수 관계 찾기 알고리즘)로 남은 계수를 정확한 유리수로 복원합니다. 시험 문제의 답이 "a·π² + b·ln2 + c 꼴"이라는 것을 알고, 답을 소수점 아래 1,000자리까지 알면 a, b, c가 무슨 분수인지 거꾸로 알아낼 수 있다는 원리입니다.
슈워츠가 이 방법을 AI에 맞는 문제로 본 이유는 세 가지입니다. 첫째, 수학·물리·컴퓨터과학이 섞여 있어 한 사람이 다 알 수 없습니다. 둘째, 코딩과 알고리즘 개발이 엄청나게 필요합니다. 셋째, 결정적으로 검산이 가능합니다. 같은 수치 계산으로 누구나, 전문가가 아니어도 스크립트 두 개만 돌려서 최종 답을 원하는 자릿수까지 적분과 대조할 수 있습니다.
20분 vs 몇 주, 그리고 타원 적분 30개
2026년 여름 Claude Fable 5가 나오자, 슈워츠는 그 코딩 능력이 과학 계산으로 이어지는지 시험했습니다. 첫 과제는 이 분야의 흩어진 아이디어를 하나의 틀로 옮기는 것이었습니다. 좋은 아이디어들은 울프럼 언어, C++, 파이썬, 줄리아로 나뉘어 있었고, 코드 없이 논문에만 있는 것도 많았습니다. Claude는 "힘들이지 않고" 해냈습니다. 슈워츠가 몇 주 걸려 짠 자기 논문의 결과를 약 20분 만에 재현했고, 그가 비효율적으로 하던 부분과 그가 몰랐던 더 나은 알고리즘까지 알려 주었습니다.
다음으로 아직 풀리지 않은 진폭을 찾게 했더니 문제가 생겼습니다. 부트스트랩으로 풀 만큼 단순한 문제는 사람에게도 단순해서 이미 대부분 풀려 있었습니다. 대화해 보니 Claude는 가장 단순한 함수족인 로그(다중로그) 함수로 표현되는 진폭만 찾고 있었습니다. 슈워츠가 그다음 단계인 타원 함수로 넓혀 보라고 하자 상황이 달라졌습니다.
타원 적분은 적분을 업으로 하는 물리학자에게도 매우 어렵습니다. 같은 질량의 입자 세 개가 도는 '선라이즈(sunrise)' 그래프가 2004년에야 정리되었습니다. 루프가 늘어나는 '바나나' 그래프는 타원곡선(2루프), K3 곡면(3루프), 칼라비-야우 다양체로 기하학의 사다리를 올라갑니다. BootLoops 사이트의 말대로 "다중로그를 넘어서면 일반적인 알고리즘이 없습니다." 그동안 계산된 타원 파인만 적분은 손에 꼽을 정도였고, 부트스트랩만으로 끝까지 계산된 것은 (슈워츠와 Claude가 아는 한) 없었습니다. 방법이 없어서가 아니라 필요한 전문성이 여러 사람에게 흩어져 있어서 아무도 시도하지 않았기 때문입니다.
Claude는 로그 경우를 위해 옮기고 만든 장비 전체를 다른 적분 부류로 쉽게 일반화했습니다. 이번에는 대부분의 소프트웨어를 직접 짜거나 물리학이 아닌 수학에서 빌려 왔습니다. 몇 주 만에 30개 적분이 처음부터 끝까지 'BootLoop'되었습니다. 15개는 알려진 결과를 새 방법으로 재현한 것이고, 15개는 처음 계산된 것입니다. BootLoops는 적분이 '풀렸다'고 말할 기준도 정해 두었습니다. 선언한 함수족 안의 닫힌 형태여야 하고, 맞추는 데 쓰지 않은 점에서 두 가지 작업 정밀도로 30자리 이상 일치해야 하며, 독립 실행되는 계산기가 있어야 합니다. 예측값은 미리 SHA 해시로 봉인해, 나중에 답을 슬쩍 맞추는 '보상 해킹'을 막습니다.
과학에는 같은 방정식이 다른 맥락에서 거듭 나타나는 신기한 성질이 있습니다. 물리학에서 확산 방정식, 포커-플랑크 방정식, 슈뢰딩거 방정식은 수학적으로 같은 모양입니다. 그래서 하나를 푸는 방법이 다른 것에도 통합니다. 슈워츠는 BootLoops가 잘하는 계산이 우주론이나 끈 이론에도 쓰인다는 것은 알았습니다. 그가 몰랐고 Claude가 알려 준 것은 이 적분들이 집단유전학의 베이즈 증거 적분에 대응되고, 파인만 적분을 줄이는 데 쓰는 유한체(finite field) 방법이 진화생물학 문제에도 쓰인다는 사실이었습니다.
예를 들어 계통학은 DNA로 종들의 족보(계통수)를 짜는 학문인데, 후보 계통수가 관측된 DNA를 얼마나 잘 설명하는지 숫자 하나로 요약하는 것이 베이즈 증거 적분입니다. BootLoops가 원래 하던 적분과 같은 종류입니다. 슈워츠는 매번 옛 도구를 쓰는 동시에 새 도구를 만들라고 Claude에게 고집했습니다. 실패한 프로젝트에서 나온 도구도 새 문을 열었습니다. 그는 이 시기를 영화 『매트릭스』에서 쿵후 프로그램을 내려받고 깨어난 네오에 비유했습니다. "나 쿵후 알아(I know Kung Fu)."
생태학 프로젝트는 하나의 사례였습니다. 원문에 따르면 슈워츠는 3개월 동안 약 400개의 후보 문제 중에서 18개 분야, 공저자 19명, 원고 36편을 진행했습니다(BootLoops 사이트와 『사이언스』 기사는 '22개 분야'라고 씁니다. 분야를 나누는 방식의 차이로 보입니다). 대부분의 프로젝트가 같은 궤적을 그렸습니다. ① Claude가 슈워츠가 보기에 그럴듯한 첫 결과를 낸다 → ② 전문가에게 가져가면 전문가는 감흥이 없지만 가능성은 본다 → ③ 함께 의미 있는 과학으로 다듬는다.
분야
무엇을 했나
숫자로 본 결과
상태·주의
집단유전학 (마이클 데사이)
희귀 돌연변이에 작용하는 자연선택의 30여 년 된 적분식(Sawyer–Hartl 1992)을 정확히 풀어 gnomAD에 적용 → 데사이의 제안으로 같은 염색체 위 돌연변이 쌍의 상관으로 전환
1000 게놈 프로젝트의 감비아인 113명에서 10만 염기 이내 변이 쌍 57억 개 분석. 유전자 전환(gene conversion) 모형이 표준 모형과의 차이를 약 95% 설명
연결된 유전 변이를 쓰는 거의 모든 분석(인구사·질병 지도)이 유전자 전환을 무시해 왔다는 점에서 의미가 크다
경제학 (아이자이어 앤드루스·제시 샤피로)
'AI 데이터 편집자': 최상위 5개 학술지 논문의 재현 패키지를 MATLAB·Stata 등에서 오픈소스 코드로 옮기고 표의 숫자를 검산
논문 4,452편, 약 3만 개 루틴. 재현 시도 87.6% 중 완전 재현은 전체의 11.2%. 불일치가 있는 논문 3,166편 중 24.9%는 첫 자리 숫자가 바뀜
NBER 워킹페이퍼 w35782(2026-09). 같은 데이터·코드로 다시 계산되는가(재현성)를 본 것이지 결론이 맞는지(반복 검증)를 본 것은 아니다
언어학 (고든·하이먼·페이터·라이언)
단어 강세 목록 AccStack: 공개된 모든 자료를 뒤져 강세 체계를 정리하고, 언어마다 근거 구절을 인용
6,072개 언어(사이트 6,080), 음운론 문헌 서지 약 16만 건. 기존 최대 데이터(StressTyp2, 699개 언어)의 8배 이상
페이터: "사람만으로 할 수 있던 것을 훨씬, 훨씬 넘어선다"
수리물리 (노엄 엘키스·토마스 그림)
와트슨의 '마지막 문제': 세 축의 이동 속도가 모두 다른 3차원 무작위 보행이 출발점에 돌아올 확률
답이 K3 곡면의 주기임을 보이고, 일반적인 속도에서는 타원 적분으로 쓸 수 없지만 종수 2 곡선 하나의 초타원 적분으로 쓸 수 있음을 보임
1939년 와트슨이 시작한 격자 적분의 마지막 경우. 원고 준비 중
지구과학 (데이비드 존스턴)
대기과학·지구화학·기후 모형을 엮어 '대산소화 사건'의 진행을 예측 모형으로
24억 5천만 년 전부터 네 번의 빙하기와 함께 산소가 오르내리다 22억 2천만 년 전에야 영구화
검증 진행 중
태양물리 (세실리아 가라포)
인구 통계학의 생명표 방법으로 흑점의 '수명'을 분석, 다른 별의 별점(starspot)으로 확장
흑점 무리는 '늙는다'(하루에 사망 위험 약 20%씩 증가). 다른 별 509개의 별점 10,051개는 늙지 않고 죽는다
별점은 외계행성 탐색의 교란 요인이다
우주론 (미하일 이바노프 등)
은하 대규모 구조로 우주론 매개변수를 맞추는 이론 도구: 2루프 파워 스펙트럼, 1루프 트라이스펙트럼
적색편이 공간 2루프 파워 스펙트럼 전체
DESI 자료 적합은 준비 중
계통학·통계·유전체학
계통수의 베이즈 증거를 빠르고 검산 가능하게 / 혼합 모형의 베이즈 증거 근사 / 단일세포 RNA의 '터짐(bursting)' 통계
단일 유전자로는 경쟁하는 계통수가 표준 샘플링 프로그램의 오차보다 작은 차이로 '동점'인 경우가 많음
대부분 검증 진행 중
모든 원고가 전문가와 함께 쓴 것은 아닙니다. BootLoops 사이트의 논문 목록을 보면 보이니치 필사본, 『페더럴리스트 페이퍼』·셰익스피어·성경 저자 판별, 메디케어 별점 같은 원고는 슈워츠 단독 저자입니다. 사이트는 "많은 원고가 LLM이 먼저 초안을 썼고, 일부는 아직 완전히 검증되지 않았다"며 그런 원고에 '예비(preliminary)' 워터마크를 붙였다고 밝혔습니다.
실제 작업 환경: 세션 수십 개와 '마스터 세션'
슈워츠의 작업 환경은 의외로 단순합니다. 모든 Claude Code 세션은 구글 클라우드 가상머신의 터미널에서 돌고, 공동연구자 취향에 따라 GitHub나 Overleaf 저장소에 연결됩니다. 프로젝트마다 세션이 따로 있고, 그 위에 다른 세션을 조율하고 계산 자원을 나누고 결과를 검증하는 마스터 세션이 있습니다. 각 세션의 하위 에이전트가 배경에서 계산을 돌리고, 중간 결과는 폴더별 마크다운 파일에 쌓입니다. 하위 에이전트를 쓰는 실용적인 이유도 있었습니다. 생물학 관련 작업에서 Fable 5의 안전 분류기에 자주 걸렸는데, 하위 에이전트로 나눠 두면 차단이 세션 전체가 아니라 에이전트 하나만 멈추게 합니다. 결과 작성, GitHub 저장소·도구 설명서·웹사이트 제작, 도구 코드 검증, 그리고 적대적 심사위원 역할로 결과를 거듭 확인하는 세션도 따로 두었습니다.
공개된 BootLoops 저장소(MIT 라이선스, 2026년 10월 15일 기준 별 365개)에는 tools/ 아래 약 50개 패키지가 있습니다. 에티엔 공식을 계산한 Mixalot, 적분 축소를 빠르게 하는 NUMKIN, 정확한 점화식을 찾는 Annihilator, 결과에 인증서를 붙이는 Baller와 CLINCH 같은 것들입니다. 작업 규약 12개(acceptance-gate, planted-truth, timing-discipline, referee-sim 등)는 별도 저장소에 Claude Code 플러그인으로 묶여 있습니다. 다만 생태학 연구의 원자료와 분석 스크립트는 저장소에 포함되어 있지 않습니다. 외부인이 자기 자료로 평가기를 돌릴 수는 있지만, 논문 전체를 저장소만으로 재현할 수는 없습니다.
이 글에서 실무자에게 가장 쓸모 있는 부분은 실패 목록일 것입니다. 슈워츠는 Claude가 시간 감각이 없고 극적인 것을 좋아한다고 썼습니다. 한 프로젝트가 끝나자 Claude는 "맷, 공식이 풀렸습니다. 2년간의 원정, 네 번의 강행군…"이라고 보고했습니다. 실제로는 사흘 일했습니다. 완료 예상 시간을 물으면 늘 터무니없이 길거나 짧았습니다. 더 큰 문제는 새 도구를 만들면 몇 분이면 끝날 계산을 며칠씩 갈아 넣는(grind) 기본 성향이었습니다. 그는 몇 번이고 "더 열심히가 아니라 더 영리하게"라고 말해야 했습니다. 긴 프로젝트에서는 맥락 압축(compaction)으로 중요한 정보가 사라졌습니다. 그래서 Claude에게 주기적으로 파일을 정리·통합해 항상 최신 계획을 볼 수 있게 했고, 이런 규약을 BootLoops에 넣었습니다.
승리 선언"완료, 별표 하나"는 대개 "전혀 안 끝남"이다. "정확히 그렇다, 한 가지만 다듬으면"은 보통 "아니다"다. 증명이 "증명 안 된 보조정리 하나"를 빼고 끝났다고 했는데, 그 보조정리가 증명 전체였다. 미증명 보조정리 금지라고 하자 이번엔 새 공리를 들고 "완료"라고 했다.
직접 보기그래프를 항상 보여 달라고 한다. 감시 장치를 다 걸어도 자동 점검은 믿을 수 없다. "잘 맞는다" 같은 정성적 주장을 경계한다.
결론 의심계산은 잘해도 결론은 틀릴 수 있다. 내가 납득할 때까지 설명하게 한다.
취향 공급Claude 모양 문제는 수천, 어쩌면 수백만 개다. Claude는 많이 인용됐지만 오래 잊힌 옛 논쟁을 좋아한다. 더 빠르거나 자릿수가 많은 것이 아니라 '새로 가능해진 것'에 집중하라고 하면 낫지만, 흥미로운지에 대한 판단은 여전히 믿을 수 없다.
한 번 더좋은 결과가 나오면 더 좋은 결과를 요구한다. 늘 뭔가를 내놓고, 가끔은 정말 훌륭하다.
갈아 넣기 감시시간 추정을 잘하게 만드는 데는 끝내 실패했다. 대신 흥미로운 일이 얼마나 걸려야 하는지 감을 기르고, 합리적인 시간 안에 진전이 있는지 감지하는 법을 배웠다. 내버려 두면 모델은 영원히 갈아 넣는다.
코어닷투데이가 에이전트로 장기 작업을 돌리며 겪은 문제와도 거의 그대로 겹칩니다. 시간 추정 실패, 거창한 완료 보고, 맥락 압축 뒤의 기억 상실이 그렇습니다. 이 목록은 특정 모델의 버릇이 아니라 현 세대 에이전트형 AI에 공통인 짜증거리에 가깝습니다. 슈워츠도 모델이 언젠가 이것들을 벗어날 것이라고 내다봅니다.
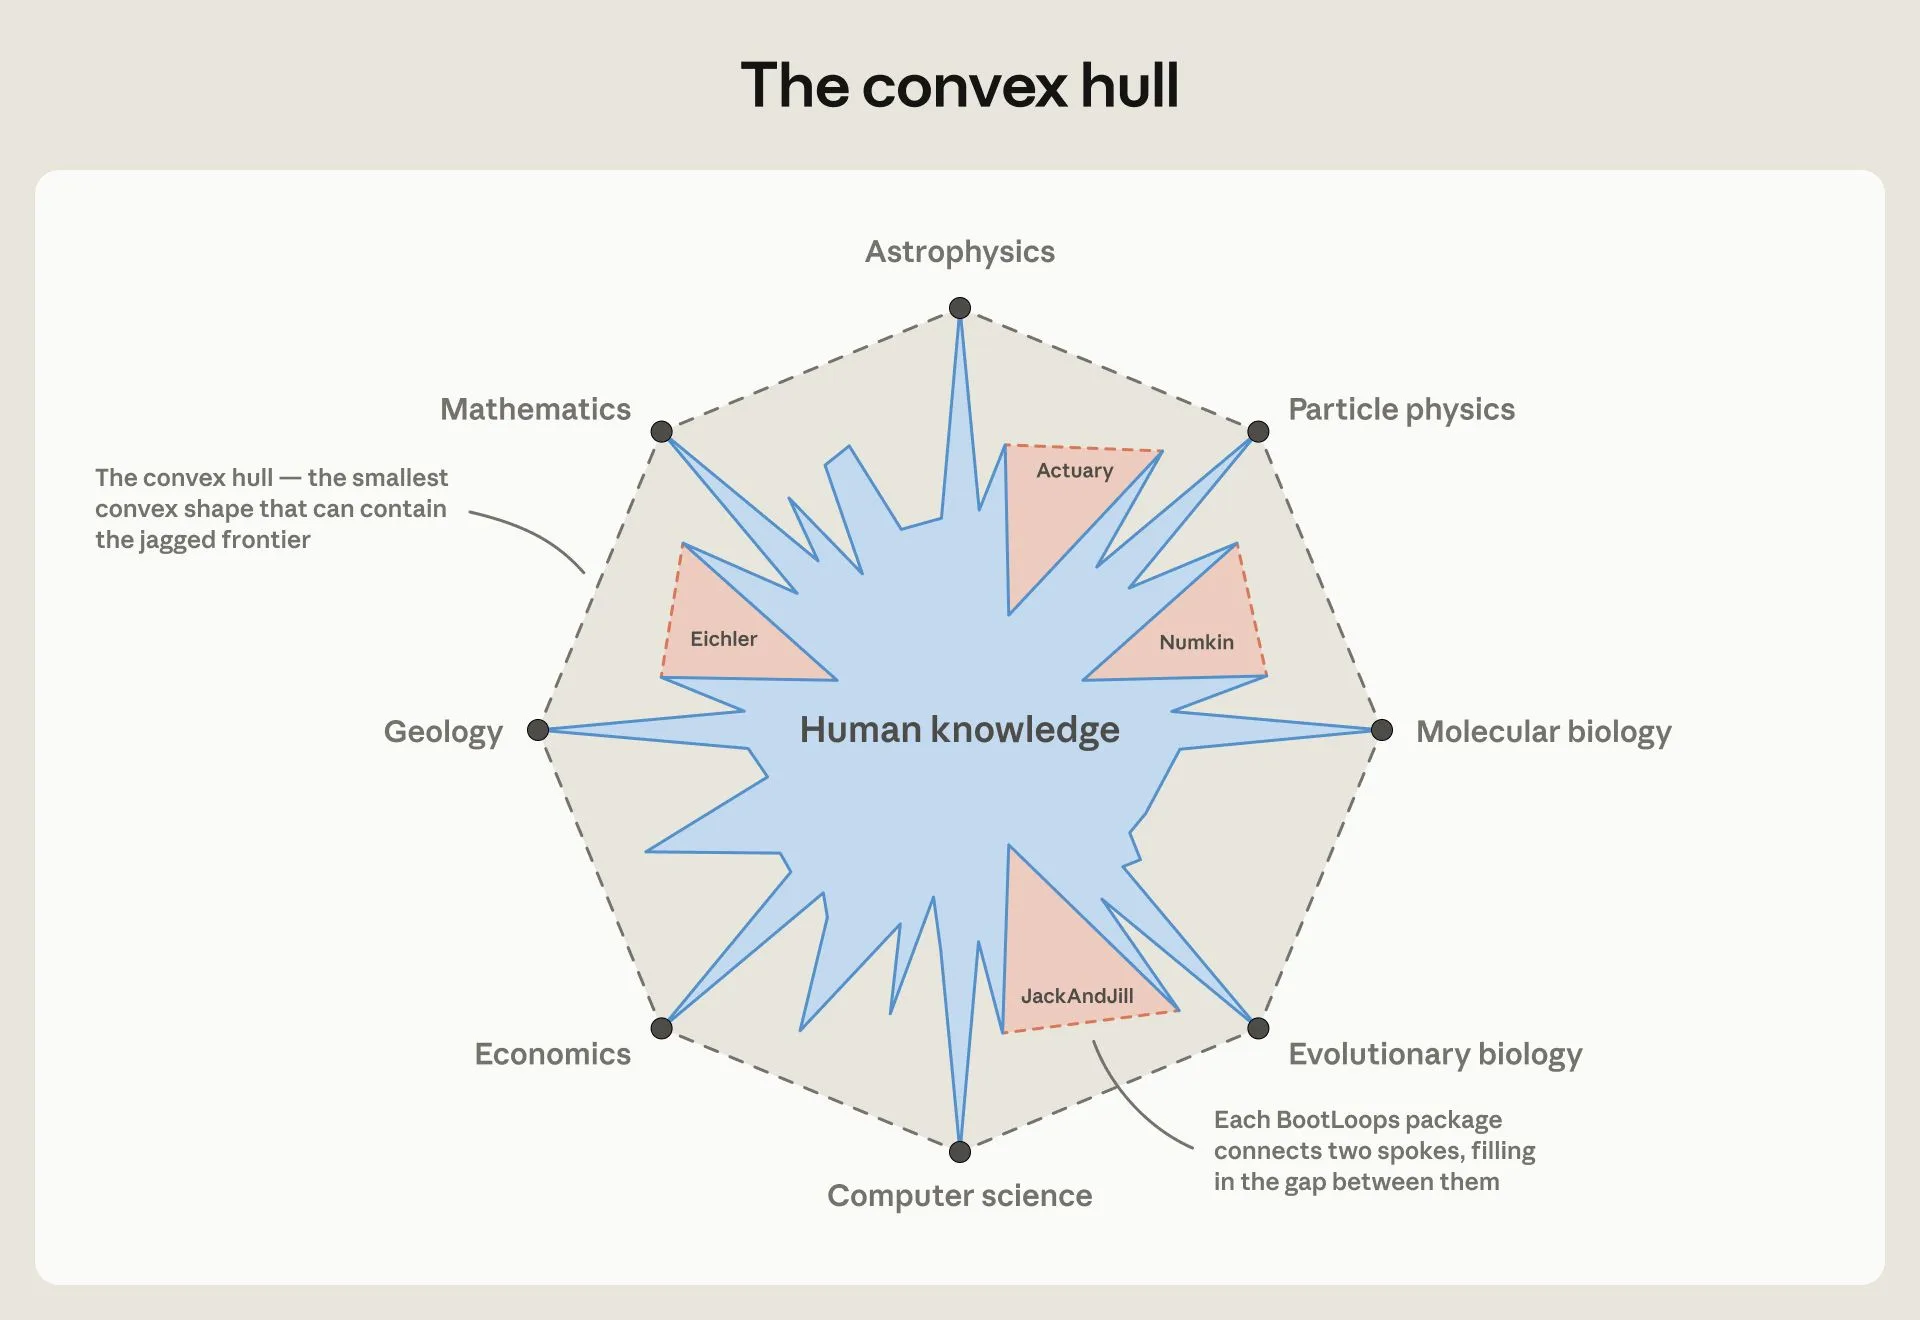
슈워츠는 AI 과학을 이야기할 때 쓰이는 볼록 껍질(convex hull) 이라는 용어를 좋아한다고 썼습니다. 어떤 도형의 모든 두 점을 직선으로 이으면, 원래 도형을 품는 가장 작은 볼록한 도형이 생깁니다. 판자에 박힌 못들을 고무줄로 감쌌을 때 고무줄이 그리는 모양입니다.
지금의 과학은 들쭉날쭉합니다. 생물학은 이쪽으로, 수학은 저쪽으로 뾰족하게 뻗어 있습니다. 한 연구실은 한 가지 방법으로 한 묶음의 유전자를 20년 동안 파고들고, 바로 옆의 유전자와 다른 방법은 묵혀 둡니다. 2023년 하버드 경영대학원과 보스턴컨설팅그룹의 실험(Dell'Acqua 등)은 AI의 능력 경계가 매끈하지 않고 들쭉날쭉한 경계(jagged frontier) 라는 표현을 유행시켰습니다. 경계 안쪽 과제에서 GPT-4를 쓴 컨설턴트는 과제를 12.2% 더 많이, 25.1% 더 빨리, 40% 높은 품질로 끝냈습니다. 그러나 경계 밖 과제에서는 AI 없이 84%가 맞혔는데 AI를 쓰니 60~70%로 떨어졌습니다. 슈워츠는 이 표현을 AI가 아니라 인간 지식 쪽에 적용합니다.
크게 보기출처: Anthropic, "Claude-shaped science" (2026-10-01), 그림 3. 파란 별 모양이 인간 지식, 점선 팔각형이 그 볼록 껍질이다. 분홍 삼각형(Actuary, Numkin, JackAndJill, Eichler)은 인접한 두 분야를 잇는 BootLoops 패키지다.
그림을 읽어 보면, 꼭짓점은 천체물리, 입자물리, 분자생물학, 진화생물학, 컴퓨터과학, 경제학, 지질학, 수학 8개 분야입니다. 인간 지식은 각 분야 쪽으로 가늘게 뻗은 가시들입니다. 가시 사이의 빈 공간, 즉 인간이 닿을 수는 있지만 특정 인간이 닿지 않은 중간 지대가 AI에게 이상적인 영역이라는 것이 슈워츠의 주장입니다. 숲 방정식이 정확히 그런 곳에 있었습니다. 입자물리의 정확 계산 도구와 생태학의 오래된 공식 사이입니다. (그림에 나온 Actuary라는 패키지는 공개 저장소와 사이트에서 찾을 수 없었습니다. 내부 이름일 수 있습니다.)
이 그림은 코어닷투데이가 「5년 계획을 태워라」에서 다룬 '인접 가능성(adjacent possible)'과도 통합니다. 새로움의 상당수는 아무도 가 보지 않은 먼 곳이 아니라, 이미 있는 것들의 바로 옆 조합에서 나온다는 생각입니다.
10장. 2026년, 이 기술은 과학에서 어떤 자리에 있나
헤드라인의 해: 수학 난제와 'AI 과학자'
2026년은 AI가 과학 헤드라인을 장악한 해입니다. 슈워츠의 글이 나오기 전 몇 달 사이에만 이런 일이 있었습니다.
5월OpenAI 모델이 에르되시의 1946년 단위 거리 추측을 반증. 팀 가워스는 "AI 수학의 이정표"라고 평했다
6월Anthropic이 Claude Fable 5 발표, 과학 연구용 작업대 Claude Science 베타 공개(60개 이상의 기술·커넥터, 검토 에이전트, 출처 추적, HPC 접속)
8월Claude가 리만 제타 함수의 임계선 위 영점 비율 하한을 41.6%에서 67.2%로 끌어올림(650개의 실패한 아이디어, Lean 형식 검증 동반)
9월Claude가 9루프 N=4 초대칭 양-밀스 진폭 계산(폰 히펠의 도전에 응답, 랜스 딕슨 검증). 같은 달 Claude 에이전트 약 950개가 21시간 동안 새로운 역전사효소 계열(ART)을 찾아냄
10월슈워츠의 「Claude-shaped science」와 BootLoops 공개(10월 1일), 『사이언스』 기사 「22개 과학 분야의 문제들은 눈앞에 해법을 숨기고 있었다」(10월 9일)
슈워츠는 이 흐름에 대해 조심스럽게 말합니다. 모델들이 어렵고 오래된 문제를 풀고 있지만 "지금까지는 대부분 기존 기법을 범위가 잘 정해진 문제에 적용한 것"이고, 헤드라인이 수학에 몰린 것은 수학이 문제를 완전히 진술하고 답을 절대적으로 검산할 수 있는 거의 유일한 과학이기 때문이라는 것입니다. 대부분의 과학은 그렇지 않습니다. 그래서 헤드라인과 연구자들이 실제로 모델을 쓸 때 느끼는 거리 사이에서 좌절과 불안이 생깁니다.
숲 방정식이 보여 준 2026년의 '실제' 역할
숲 방정식 사례는 2026년 AI의 과학적 역할을 꽤 정확하게 보여 줍니다. 세 층으로 나눠 보겠습니다.
① 연결자이 문제는 저 도구로 풀린다물리학의 정확 계산 기법이 생태학 공식에 맞는다는 것을 알아봄. 사람이라면 두 분야를 다 아는 극소수만 할 수 있는 일
② 장인끝까지 정확히 계산한다곱셈 트리, 볼 산술, 구간 뉴턴 인증, 점화식 유도, 수만 줄의 도구 코드. 사람이 몇 주~몇 달 걸릴 일을 며칠에
③ 사람의 몫그래서 그게 왜 중요한가"중립 예측을 빼고 나머지를 보자"는 질문 전환, 결과의 해석, 분야가 무엇을 궁금해하는지에 대한 감각. 오드와이어가 한 일
①과 ②는 지금의 AI가 사람보다 낫거나 훨씬 빠릅니다. ③은 아직 사람의 몫입니다. 『사이언스』 기사의 표현을 빌리면 BootLoops는 "무엇을 계산할 수 있는지는 말해 주었지만 과학자들이 정말 무엇을 궁금해하는지는 알아내지 못했다." 즉 연구 취향(research taste)이 없었다는 것입니다. 오드와이어도 같은 기사에서 "탄탄하고 흥미로운 결과가 있었지만 분야를 크게 움직일 것 같지는 않다"면서도 "이 협업으로 모든 것이 훨씬 빨리 움직였다"고 말했습니다.
과학 방법론은 바뀌지 않는다, 속도가 바뀐다
슈워츠는 전망에서 과학적 방법을 다시 생각할 필요는 없다고 단언합니다. 아무리 모델이 똑똑해져도 과학의 진보는 대부분 얻고, 이해하고, 확인해야 하는 실제 데이터에서 나옵니다. 한 번의 확인이 다음 질문을 만드는 고리입니다. AI는 그 고리 안에 들어갈 수 있고 그것은 진짜 가치가 있지만, 고리를 한 점으로 줄여 주지는 않습니다. 암 치료법이나 핵융합로도 프롬프트 하나가 아니라 이전 결과 위에 하나씩 쌓아 올리는 방식으로 올 것이라고 그는 봅니다.
그래서 그는 밀레니엄 문제나 거대 과학에 쏠리는 관심이 Claude가 즐겨 쓰는 말로 '풋건(footgun)', 즉 제 발등을 찍기 쉬운 기능일 수 있다고 경고합니다. 비현실적인 기대가 이미 가능한 생산적 활용을 가로막을 수 있기 때문입니다. 숲 방정식은 노벨상감 발견이 아닙니다. 하지만 20년 동안 '언젠가 누군가 하겠지' 상태로 남아 있던 일을 끝냈고, 그 결과가 생태학자의 질문과 만나 새 모형이 되었습니다. 2026년 AI가 과학에서 하는 실제 일은 대부분 이런 모습일 가능성이 큽니다.
한국에는 어떤 의미가 있나
한국도 'AI 기반 과학'을 정책의 중심에 올렸습니다. 과학기술정보통신부는 2026년 4월 구글 딥마인드와 AI 과학 협력 양해각서를 맺었고, 9월 말~10월 초 국제학술대회 'AI4Sci Korea 2026'을 열면서 국가과학AI연구센터 해커톤을 함께 진행했습니다. 한국연구재단은 연구자가 AI와 함께 연구 아이디어를 겨루는 'AI Co-Scientist Challenge Korea'를 운영했습니다(세부 내용은 보도마다 조금씩 다릅니다).
숲 방정식의 교훈을 한국 상황에 옮기면 이렇습니다.
공개 데이터가 이미 쌓인 분야가 먼저다. 바로콜로라도 조사는 40년 넘게 공개 자료로 쌓였습니다. 한국에도 국가산림자원조사, 국가생물다양성 자료, 기상·해양 관측, 건강보험 빅데이터처럼 수십 년 쌓인 자료가 많습니다. '이론은 있는데 규모 때문에 계산을 못 한' 분석이 남아 있을 가능성이 큽니다.
연결자는 사람이 아니어도 된다. 판정자는 사람이어야 한다. 슈워츠가 자기 분야 밖에서 Claude의 결과에 "나도 모르게 동의하게 된다"고 한 대목은 학제 간 연구를 장려하는 모든 제도에 대한 경고입니다. AI가 만든 학제 간 결과를 검토할 그 분야 전문가를 함께 배치해야 합니다.
재현 패키지 검증은 바로 할 수 있다. 경제학 논문 4,452편의 재현 패키지를 검산한 'AI 데이터 편집자'는 국내 학회지, 정부 통계 보고서, 사내 분석 보고서에도 그대로 적용할 수 있는 Claude 모양 과제입니다.
학생은 무엇을 배워야 하나, 공은 누구에게 가나
슈워츠는 두 가지 불편한 질문을 숨기지 않습니다. 첫째, 대학원생을 어떻게 가르쳐야 할지 모르겠다고 고백합니다. 2년 전이었다면 '엔지니어를 위한 파이썬'을 필수 과목으로 권했겠지만 지금은 필요 없다고 합니다. 신경망의 세부를 배우는 것도 효용이 제한적입니다. Claude에게 최신 기계학습 방법을 찾아 적용하라고 하면 되기 때문입니다. 3년짜리 연구비를 신청한 계산 문제를 AI가 하룻밤에 풀 수도 있는데, 연구 계획을 어떻게 세워야 할까요?
둘째, 공로(credit)의 문제입니다. 그는 AI가 통상의 구조를 뒤집을 위험이 있다고 씁니다. 보통은 맨 위의 사람이 공을 가져가고 손으로 문제를 푼 사람은 아무것도 받지 못합니다. 그런데 이번에는 손으로 푼 쪽이 AI입니다. 그는 이 문제가 어떻게 풀릴지 모르지만 "인간의 기여가 타이핑이었던 척해서는 해결되지 않는다"고 말합니다. arXiv는 AI를 공저자로 올리는 것을 금지하고 있어, 슈워츠는 「Vibe Physics」 논문에서 Claude에게 감사의 글로만 공을 돌렸습니다.
그래도 그의 결론은 낙관적입니다. 평범한 과학자('조 사이언티스트')는 오히려 좋은 위치에 있다는 것입니다. 시스템생물학처럼 데이터는 풍부한데 이론이 굶주린 분야에서 큰 성장이 올 것이고, 사람은 계산과 분석의 지루함에서 풀려나 방향을 정하고 이끄는 더 깊은 지적 작업을 하게 될 것이며, 무엇보다 과학자들이 자기 안방에서 벗어나 다른 분야와 시너지를 찾게 될 것이라고 봅니다. 그의 마지막 문장은 이렇습니다. "Claude 모양의 과학에 집중해서 얻는 가장 신선한 결과는, 인간 모양의 과학이 어떤 것인지 알아보게 해 준다는 점이다."
11장. 반론과 한계: 무엇을 아직 믿으면 안 되나
이 글은 흥미로운 만큼 조심해서 읽어야 합니다. 원문, BootLoops 사이트, 코드, 반응을 대조하며 찾은 주의점을 정리합니다.
주장
확인된 것
주의할 점
"20년 동안 아무도 못 푼 방정식"
23만 그루 규모, 65개 조사구 동시 적합, 인증된 오차 한계는 새로움
에티엔 공식은 2005년부터 바로콜로라도(10cm 이상)에 계산되어 왔다. '계산 불가능'이 아니라 '규모·인증의 벽'이었다
"4.5배 빠르게 변한다"
사이트: 대부분 종 2~6배, 전체로 '4배 자주 교체되는 것처럼'
4.5라는 숫자와 그 정의는 미공개 원고에만 있다. 표류보다 빠른 변화 자체는 2014~2016년에 이미 알려졌다
"생활사 모형이 데이터와 훌륭히 일치"
예측 순위 상관 0.71(한 조사 뒤), 0.68(두 조사 뒤), 방향 74%
세 생태학 원고 모두 동료 심사 전이다. 장기 풍부도 보정은 저자 스스로 '현상론적'이라 부른다
"18개 분야 36편"
원고 목록 36편 확인
사이트·『사이언스』는 22개 분야. 상당수가 '준비 중'이거나 LLM 초안, 일부는 단독 저자
"전문가와 함께"
공저자 19명, 감사의 글 22명
유전학 결과는 생물학자 세 명에게 연락한 끝에 한 명이 답했다. 일부 결과는 동료들의 조언으로 공개를 보류했다
이해 충돌. 슈워츠는 이 프로젝트 기간에 Anthropic 방문 연구원이었습니다(NBER 논문에는 'Anthropic 계약자'로 표기). BootLoops 사이트는 연구비를 Anthropic이 댔다고 밝힙니다. 다만 BootLoops는 Anthropic 프로젝트가 아니며, 슈워츠가 소유·관리하고 다른 모델(Gemini, ChatGPT)로도 쓸 수 있게 만들었다고 합니다. 글이 Anthropic 공식 블로그에 실렸다는 점은 염두에 둘 만합니다.
과학 공동체의 반응. 해커뉴스의 원문 스레드는 30점, 댓글 12개로 조용했습니다. "이게 어떻게 1면에 올라왔는지 수상하다", "AI에 너무 취해 있다"는 냉소도 있었습니다. "36편을 Claude와 썼다"는 레딧 링크 스레드(50점, 댓글 약 70개)에서는 더 날카로운 말이 나왔습니다. 고에너지 이론 연구자 출신이라는 한 댓글은 "대부분 물리와 무관하다. 한꺼번에 그렇게 많은 분야에 논문을 내는 오만함에는 특별한 성격이 필요하다"고 썼습니다. "노벨병 같다", "이러다 과학에 '슬롭(slop) 위기'가 온다, 누가 다 심사하나"라는 걱정도 있었습니다. 반대로 "다른 분야 논문 상당수는 전문가와 공저했다", "본인이 자기 분야를 제대로 안다면 Claude는 싸고 빠른 학부생 부대 역할을 한다"는 반론도 있었습니다. 보이니치 필사본 연구 포럼에서는 슈워츠의 보이니치 원고를 AI '슬롭'이라고 불렀습니다.
과학이 좁아질 위험. 슈워츠 자신도 Claude가 "많이 인용됐지만 오래 잊힌 옛 논쟁"을 좋아한다고 썼습니다. 2026년 『네이처』에 실린 4,100만 편 논문 분석은 AI를 쓰는 연구자가 논문을 3.02배 더 내고 인용을 4.84배 더 받지만, AI 논문이 다루는 주제 범위는 4.6% 더 좁다고 보고했습니다. 『사이언스』는 BootLoops의 옛 문제 선호를 이 연구와 연결했습니다. 볼록 껍질을 메우는 일은 가치가 있지만, 모두가 껍질 안쪽만 메우면 껍질은 넓어지지 않습니다.
12장. 실무 체크리스트: 내 일에서 'Claude 모양'을 찾는 법
원문의 교훈을 연구자와 실무자가 바로 쓸 수 있게 정리했습니다.
1
'이론은 있는데 계산을 못 한' 것을 찾는다
우리 분야에 공식은 알려졌지만 규모·정밀도·코드 부족으로 근사만 써 온 계산이 있는가? 에티엔 공식처럼 20년 동안 '작은 표본에서만' 계산된 식이 후보 1순위다.
2
검산 경로를 먼저 정한다
답을 독립적으로 확인할 방법(알려진 작은 경우, 다른 알고리즘, 30자리 수치 대조, 확률의 합이 1이 되는지)을 일을 맡기기 전에 정한다. 예측값은 미리 봉인한다.
3
'완료'의 기준을 글로 박아 둔다
"미증명 보조정리 없음, 새 공리 없음, 그래프 첨부, 정성적 표현 금지." 성공 기준이 느슨하면 '별표 하나'가 돌아온다.
4
갈아 넣기 전에 도구를 만들게 한다
며칠짜리 계산이 보이면 멈추고 "이걸 몇 분으로 줄일 도구는?"을 묻는다. 만든 도구는 다음 프로젝트를 위해 남긴다(하네스가 자라게).
5
분야 밖 결과는 반드시 전문가에게 가져간다
"이게 이 분야에서 왜 중요한가?"에 답할 사람이 없으면 발표하지 않는다. 전문가가 어깨를 으쓱하면 실패가 아니라 질문을 바꿀 기회다. 숲 방정식은 '중립을 빼고 나머지를 보자'는 한마디로 새 모형이 되었다.
맺음말: 우연을 정확히 알아야 필연이 보인다
허벨은 2001년에 "숲의 모습이 전부 우연일 수도 있다"고 도발했습니다. 에티엔은 2005년에 그 도발을 확률 공식으로 바꿨습니다. 그 공식은 20년 동안 작은 숲에서만 계산되었습니다. 2026년 물리학자와 AI가 입자물리의 계산 도구를 들고 와서 23만 그루 규모로 그 공식을 정확히 풀었습니다. 그러자 "숲은 우연보다 4배 이상 빨리 변한다"는, 생태학자들에게는 이미 익숙한 결론이 정확한 숫자로 나왔습니다.
이야기의 진짜 전환점은 그다음입니다. 한 생태학자가 "그러면 우연을 빼고 나머지를 보자"고 말했고, 그 나머지 속에서 모든 종이 함께 겪는 좋은 해와 나쁜 해, 그리고 버티고 자라고 퍼뜨리는 나무들의 개성이 드러났습니다. 우연을 정확히 계산할 수 있게 되자 우연이 아닌 것이 보이기 시작한 것입니다.
AI와 과학의 관계도 이렇게 볼 수 있습니다. AI가 계산할 수 있는 것을 정확히 계산하게 하면, 사람만이 할 수 있는 일이 무엇인지가 더 선명해집니다. 슈워츠의 말대로 Claude 모양의 과학은 결국 인간 모양의 과학을 비추는 거울입니다.
숲 밖의 나머지 원고들, 곧 1,000자리 숫자로 푼 입자 적분, 57억 쌍으로 찾은 유전자 전환, 경제학 논문 4,452편 검산, 6,072개 언어의 강세, 87년 묵은 와트슨 적분, 늙는 흑점과 이를 굴린 작업 규약은 2부 「숲 밖의 35편」에서 이어서 다룹니다.
Barrera, O., Dersy, A., Husain, R., Schwartz, M. D. & Zhang, X. "Analytic Regression of Feynman Integrals from High-Precision Numerical Sampling." arXiv:2507.17815 (2025)
Schwartz, M., Andrews, I. & Shapiro, J. M. "An LLM Workflow That Reproduces, Improves, and Extends Published Economics Research." NBER Working Paper w35782 (2026)
von Hippel, M. "Yes, Claude can do nine loops." Anthropic Research, 2026-09-25
중립 이론의 계보
Fisher, R. A., Corbet, A. S. & Williams, C. B. "The relation between the number of species and the number of individuals in a random sample of an animal population." J. Anim. Ecol. 12:42–58 (1943). doi:10.2307/1411
Preston, F. W. "The commonness, and rarity, of species." Ecology 29:254–283 (1948). doi:10.2307/1930989
Hutchinson, G. E. "The paradox of the plankton." Am. Nat. 95:137–145 (1961)
MacArthur, R. H. & Wilson, E. O. "An equilibrium theory of insular zoogeography." Evolution 17:373 (1963) · The Theory of Island Biogeography (Princeton, 1967)
Kimura, M. "Evolutionary rate at the molecular level." Nature 217:624–626 (1968). doi:10.1038/217624a0
Ewens, W. J. "The sampling theory of selectively neutral alleles." Theor. Popul. Biol. 3:87–112 (1972)
Caswell, H. "Community structure: a neutral model analysis." Ecol. Monogr. 46:327–354 (1976)
Hubbell, S. P. "Tree dispersion, abundance, and diversity in a tropical dry forest." Science 203:1299–1309 (1979)
Hubbell, S. P. The Unified Neutral Theory of Biodiversity and Biogeography. Princeton University Press (2001)
숲 방정식과 그 계산
Etienne, R. S. "A new sampling formula for neutral biodiversity." Ecol. Lett. 8:253–260 (2005). doi:10.1111/j.1461-0248.2004.00717.x
Etienne, R. S. "A neutral sampling formula for multiple samples and an 'exact' test of neutrality." Ecol. Lett. 10:608–618 (2007)
Etienne, R. S. "Maximum likelihood estimation of neutral model parameters for multiple samples with different degrees of dispersal limitation." J. Theor. Biol. 257:510–514 (2009)
Volkov, I., Banavar, J. R., Hubbell, S. P. & Maritan, A. "Neutral theory and relative species abundance in ecology." Nature 424:1035–1037 (2003)
Hankin, R. K. S. "Introducing untb, an R package for simulating ecological drift under the unified neutral theory of biodiversity." J. Stat. Softw. 22(12) (2007)
Harris, K. et al. "Linking statistical and ecological theory: Hubbell's unified neutral theory of biodiversity as a hierarchical Dirichlet process." arXiv:1410.4038 (2014)
검증과 비판
McGill, B. J. "A test of the unified neutral theory of biodiversity." Nature 422:881–885 (2003)
Ricklefs, R. E. "The unified neutral theory of biodiversity: do the numbers add up?" Ecology 87:1424–1431 (2006)
Rosindell, J., Hubbell, S. P. & Etienne, R. S. "The unified neutral theory of biodiversity and biogeography at age ten." Trends Ecol. Evol. 26:340–348 (2011)
Fung, T., O'Dwyer, J. P. et al. "Reproducing static and dynamic biodiversity patterns in tropical forests: the critical role of environmental variance." Ecology 97:1207–1217 (2016)
Chisholm, R. A. et al. "Temporal variability of forest communities: empirical estimates of population change in 4000 tree species." Ecol. Lett. 17:855–865 (2014)
Kalyuzhny, M., Kadmon, R. & Shnerb, N. M. "A neutral theory with environmental stochasticity explains static and dynamic properties of ecological communities." Ecol. Lett. 18:572–580 (2015)
O'Dwyer, J. P. & Green, J. L. "Field theory for biogeography: a spatially explicit model for predicting patterns of biodiversity." Ecol. Lett. 13:87–95 (2010)
Jops, K., Dalling, J. W. & O'Dwyer, J. P. "Life history is a key driver of temporal fluctuations in tropical tree abundances." PNAS 122:e2422348122 (2025)
Condit, R. et al. "Thirty years of forest census at Barro Colorado and the importance of immigration in maintaining diversity." PLoS ONE 7:e49826 (2012)
Davies, S. J. et al. "ForestGEO: Understanding forest diversity and dynamics through a global observatory network." Biol. Conserv. 253:108907 (2021)
숲 밖의 중립 이론
ter Steege, H. et al. "Hyperdominance in the Amazonian tree flora." Science 342:1243092 (2013)
Hubbell, S. P. et al. "How many tree species are there in the Amazon and how many of them will go extinct?" PNAS 105:11498–11504 (2008)
Sloan, W. T. et al. "Quantifying the roles of immigration and chance in shaping prokaryote community structure." Environ. Microbiol. 8:732–740 (2006)
Williams, M. J. et al. "Identification of neutral tumor evolution across cancer types." Nat. Genet. 48:238–244 (2016)
Hahn, M. W. & Bentley, R. A. "Drift as a mechanism for cultural change: an example from baby names." Proc. R. Soc. B 270:S120–S123 (2003)
2026년 맥락과 반응
Dell'Acqua, F. et al. "Navigating the Jagged Technological Frontier." Harvard Business School Working Paper 24-013 (2023)
"Problems in 22 scientific fields had solutions hiding in plain sight. An AI has found them." Science, 2026-10-09